
 English
文献解读|Cell(45.1):空间生物学揭示免疫抑制的非黑色素瘤皮肤癌中巨噬细胞状态的改变
✦ +
+
论文ID
原名:Spatial biology reveals altered macrophage states in immunosuppressed non-melanoma skin cancer
译名:空间生物学揭示免疫抑制的非黑色素瘤皮肤癌中巨噬细胞状态的改变
期刊:Cell
影响因子:45.1
发表时间:2026.08.05
DOI号:10.1016/j.cell.2026.07.031
背 景
非黑色素细胞皮肤癌(NMSC)主要由基底细胞癌(BCC)和表皮鳞状细胞癌(cSCC)组成,是美国最常见的恶性肿瘤。特别是cSCC,作为NMSC中第二常见的亚型,且更具侵袭性,其发病率正在上升。免疫抑制(IS)患者尤其容易患NMSC。值得注意的是,接受实体器官移植的受者患cSCC的风险比免疫功能正常(IC)个体高出65至250倍。IS的非黑色素瘤皮肤癌患者的临床预后较差,且与全身免疫抑制相关的肿瘤免疫微环境(TME)仍未完全阐明。
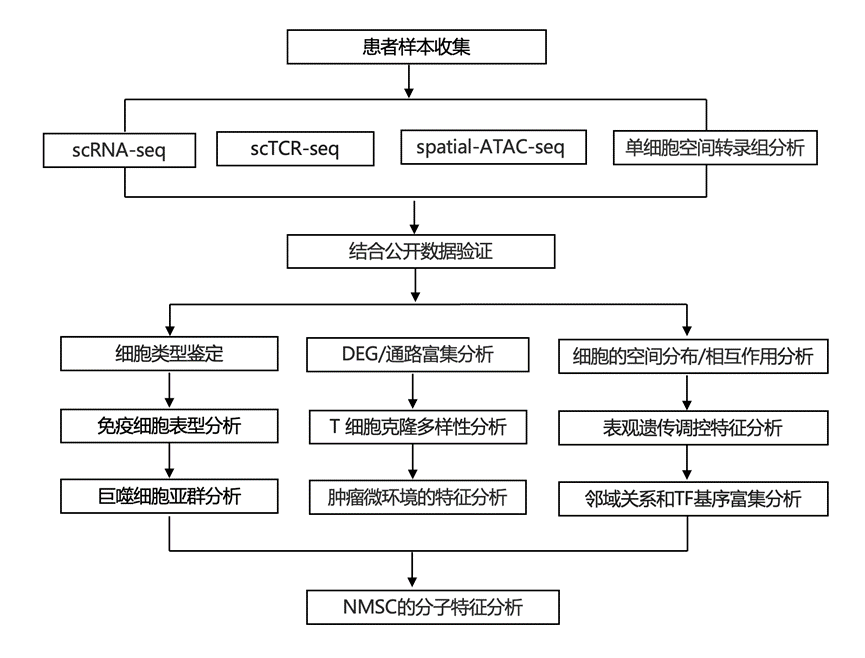
实验设计
结 果
01
患者人口统计学和临床特征
在本队列研究中,研究团队分析了来自138名患者(包括头颈部及非头颈部部位)的150个样本,比较了IC组与IS组患者的临床和人口统计学特征,并对所有癌症样本进行了多组学分析(图1A-B)。总体而言,纳入了55名IC患者(占39.8%)和83名IS患者(占60.1%)。其中28例为BCC(20%),109例为cSCC(78.9%),另有1例同时具有BCC和cSCC的特征。患者年龄范围为42至92岁,两组均以男性为主(分别为89.1%)。IC患者的平均年龄为63岁(范围:43-92岁),IS患者的平均年龄为68.5岁(范围:42–90岁)。在IS患者中,血液系统恶性肿瘤(HM)占多数(n=60,43.4%),包括慢性淋巴细胞白血病(n=20)、滤泡性淋巴瘤(n=7)、急性髓系白血病(n=3)、弥漫大B细胞淋巴瘤(n=3)以及多发性骨髓瘤(n=2)。器官移植受者(OTRs)共14例(占10.1%),最常见的为肾移植(n = 4)和肝脏(n = 2)移植,另有9名患者(6.5%)因其他病因,如长期使用糖皮质激素、自身免疫性疾病(例如类风湿性关节炎和系统性红斑狼疮)或HIV而接受治疗。他们首先评估了免疫抑制对本研究队列生存结局的影响。总体生存率(OS)分析显示,免疫抑制组患者的死亡率更高,5年OS为33.3%,而免疫对照组为68.8%(图1C)。无病生存率(DFS)也受到免疫状态的影响,5年DFS分别为55.2%(IS)和24.2%(IC)(图1C)。这些研究结果表明,全身性免疫抑制与肿瘤治疗效果显著下降相关,凸显了有必要更深入地理解该人群中疾病进展所依赖的免疫机制。
鉴于免疫检查点抑制剂(ICI)在IS患者群体中的应用数据匮乏,他们首先尝试识别NMSC患者中免疫细胞群的差异。为此,通过对分离的CD45 +细胞进行单细胞转录组分析(scRNA-seq),无偏倚地定义了NMSC患者TME的免疫细胞组成,获得了25个转录聚类,并系统地将其归类为10种主要的免疫细胞类型(图1D)。使用CellTypist对聚类内的细胞类型进行了注释。他们在IC和IS患者的肿瘤中均检测到了所有类型的免疫细胞群(图1D)。然而,观察到两组间总体免疫细胞亚型的相对比例没有统计学上的显著差异(图1E-F)。scRNA-seq结果表明,肿瘤微环境中免疫细胞的组成和相对比例总体相似。
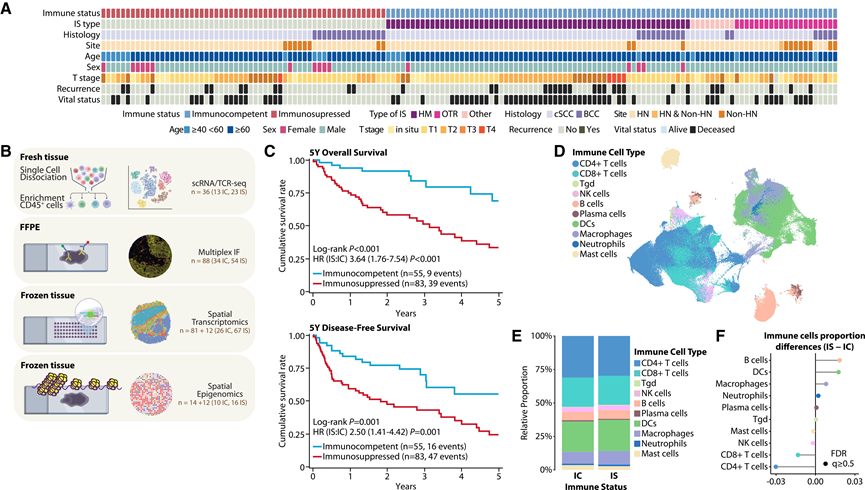
图1. NMSC免疫功能正常(IC)和免疫抑制(IS)患者中的免疫景观。
(A) 患者人口统计热图。(B) 实验方法及分析平台示意图。scRNA/TCR测序使用CD45+富集细胞进行。各方法所用总样本数以及来自免疫功能正常(IC)和免疫抑制(IS)患者的样本数量列于下方。(C) 免疫功能正常(IC)与免疫抑制(IS)患者5年总生存率(OS)和无进展生存率(DFS)的Kaplan-Meier生存曲线。 (D) scRNA-seq分析的所有免疫细胞的UMAP可视化图,并标注了主要免疫细胞类型。(E) scRNA-seq分析的IC与IS样本中不同免疫细胞类型的比例对比柱状图。(F) 点图显示IS与IC之间免疫细胞比例差异。
02
患有非黑色素瘤皮肤癌的NMSC患者中巨噬细胞亚群的差异及其空间分布
scRNA-seq虽然能够提供分离的CD45 +细胞的相对免疫细胞组成信息,但无法捕捉空间区室化或单位组织面积的细胞密度,他们接下来采用多重免疫荧光(mIF)技术来量化肿瘤和间质区室内的免疫细胞密度。使用mIF分析了88例cSCC患者的样本(图2A)。比较了肿瘤微环境(TME)中肿瘤内和间质区域内CD4 + T细胞、CD8 + T细胞、B细胞和CD68+巨噬细胞的分布(图2A-B)。虽然这两个区室对于有效的抗肿瘤免疫反应都至关重要,但肿瘤和间质区室之间的有效分布尤为重要。未观察到IC和IS患者样本中肿瘤或间质区室中CD4+ T细胞、CD8+ T细胞或B细胞丰度存在显著差异。值得注意的是,IC组的肿瘤内CD68+巨噬细胞密度显著高于IS组(图2B)。在IC组和IS组中,细胞角蛋白阴性间质中的CD68 +巨噬细胞密度均显著高于细胞角蛋白阳性肿瘤。在乳腺癌或肺癌等实体瘤患者中,巨噬细胞中程序性死亡配体1(PD-L1)表达升高与总生存期(OS)延长相关。鉴于肿瘤内CD68+巨噬细胞分布的显著差异,他们研究了IS组和IC组患者CD68+巨噬细胞上PD-L1表达的差异。在IS队列中,肿瘤CD68+ PD-L1+细胞密度显著低于基质CD68+ PD-L1+细胞密度。有趣的是,通过scRNA-seq评估的CD68+细胞和CD68+ CD274+亚群的总体相对比例显示, IC和IS样本中捕获的CD45+细胞中巨噬细胞群的相对比例相似。
总体而言,scRNA-seq用于分析分离的 CD45+细胞,以评估基于相对比例的免疫细胞组成,而多通道免疫荧光 (mIF) 则能够量化肿瘤和基质区室内单位面积内的免疫细胞密度。在此背景下,scRNA-seq 显示 IC 和 IS 样本中巨噬细胞群的相对比例相似,而 mIF 则检测到 CD68+巨噬细胞密度和区室分布的差异。
鉴于CD68+细胞的空间组织结构发生了改变,他们试图更清晰地定义肿瘤内髓系细胞的结构。利用mIF技术对来自克利夫兰诊所的外部队列进行了分析,以评估肿瘤内髓系细胞的组成(图2C-E)。在髓系细胞标志物(CD11b/CD11c/CD68)方面,与IC肿瘤相比,IS肿瘤的肿瘤内髓系细胞密度降低,其中CD68+巨噬细胞显著减少。综上所述,这些数据表明免疫抑制与肿瘤内髓系细胞群(尤其是巨噬细胞)的减少以及相对于IC肿瘤的肿瘤内髓系细胞密度降低相关(图2D-E)。
鉴于IS患者NMSC样本中肿瘤不同区域CD68+巨噬细胞的迁移存在差异,他们试图利用队列进行更稳健的功能分析。因此,基于scRNA-seq数据进行了详细的巨噬细胞亚群分析。对来自非黑色素瘤皮肤癌 (NMSC) 的 IC 和 IS 患者TME样本中的巨噬细胞进行亚群分析,根据其功能基因表达,鉴定出 6 个不同的巨噬细胞聚类(图 2F-G):富含炎症细胞因子的肿瘤相关巨噬细胞 (TAM)(Inflam-TAM;IL1β+IL1RN+CXCL8/3/1/2+)、细胞外基质 (ECM) 降解型 TAM(ECM-Deg TAM;MMP9+SPARC+)、脂质相关型 TAM(LA-TAM;APOC1+APOE+LPL+)、增殖型 TAM(Prolif-TAM;MKI67+STMN+TYMS+)和干扰素 (IFN) 反应型TAM(IFN-TAM;CXCL9/10+IFITM1/3+)和驻留组织巨噬细胞(RTM;CD163+MS4A7+MAF+MRC1+)。IC 和 IS 肿瘤中巨噬细胞亚型的组成存在差异(图 2H-I)。RTM 在 IS 样本中相对更多,而增殖性 TAM 在 IC 样本中相对更多;然而,这些差异不具有统计学意义(图 2H-I)。对每个巨噬细胞亚群中差异表达基因进行 Ingenuity 通路分析 (IPA),发现 IS 和 IC 肿瘤之间存在通路水平的差异,且这些差异在不同的 TAM 群体中有所不同(图 2J-K)。在多个亚群中,与 IC 相比,IS 中一些固有免疫和细胞因子相关通路显示出负Z值,包括 FCGR 依赖性吞噬作用以及白细胞介素 (IL)-6、IL-17 和 IL-33 信号通路。相比之下,巨噬细胞活化程序并未普遍降低,经典活化在部分TAM亚群中显示出正Z评分。RTM、炎症TAM和ECM-Deg/IFN反应性细胞群的通路富集程度和方向各不相同,凸显了IS肿瘤中不同巨噬细胞亚群通路活性的异质性。
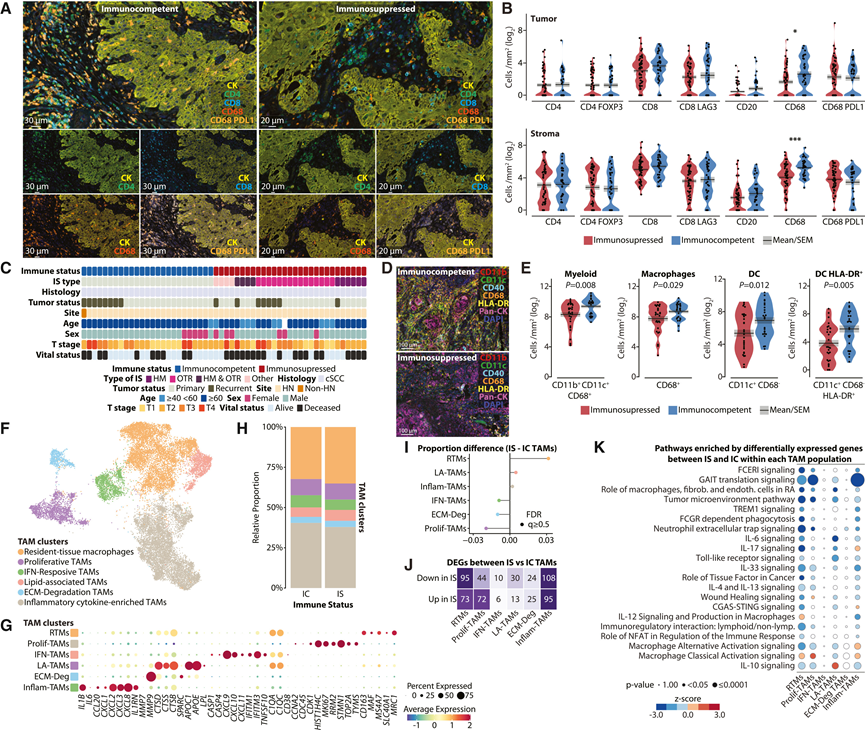
图2. 整合空间与转录组分析揭示IS NMSC中髓系和巨噬细胞景观的改变。
(A) 使用抗CK、CD4、CD8、CD68、FOXP3、LAG3和PD-L1抗体及DAPI反染色对cSCC组织进行多重免疫荧光分析。(B) 箭头图显示IS和IC患者cSCC样本肿瘤区与间质区免疫细胞表型
(C) 来自克利夫兰诊所外部验证队列患者的临床与人口学注释热图。(D) 使用抗CD11b、CD11c抗体对克利夫兰诊所队列中IC和IS患者cSCC组织进行的多重免疫荧光分析CD40、CD68和HLA-DR,以及CK(泛CK)和DAPI染色。 (E) 用mIF定量分析的IC和IS肿瘤中总髓系细胞(CD11b⁺CD11c⁺CD68⁺)、巨噬细胞(CD68⁺)、树突状细胞(DCs;CD11c⁺CD68⁻)和抗原呈递树突状细胞(CD11c⁺CD68⁻HLA-DR⁺)的密度分布。(F) 使用scRNA-seq技术对所有IC和IS NMSC中的巨噬细胞群体进行UMAP可视化,并按转录特征定义的TAM亚型进行注释:RTMs、增殖性TAM(Prof-TAM)、IFN响应性TAM(IFN-TAM)、脂质相关TAM(LA-TAM)、ECM降解TAM(ECM-Deg)和炎症性细胞因子富集TAM(Inflam-TAM)。(G) 用于识别巨噬细胞类型的经典基因标记点图。(H) 比较IC与IS NMSC中TAM群体比例的条形图。(I) 点图显示IS与IC之间巨噬细胞亚群的差异及其对应的FDR值。
(J) 在巨噬细胞亚群中,IS与IC肿瘤间不同表达基因(DEG)的数量。(K)IS与IC TAM细胞群体中DEGs的通路富集分析,显示关键的免疫调节和炎症信号通路。
03
IS TME 中 T 细胞克隆多样性降低
为了评估IS患者NMSC TME中CD68+细胞分布的改变是否会导致T细胞活化降低,他们利用单细胞TCR测序(scTCR-seq)分析了T细胞的克隆多样性。首先,进行了详细的T细胞亚群分析,鉴定出多个功能不同的亚群(图3)。从IC和IS患者的NMSC肿瘤中分离出CD45+细胞群,并提取出T细胞和自然杀伤(NK)细胞,然后进一步对不同的T细胞亚群进行亚群分析。
在CD8+ T细胞中,鉴定了11个涵盖所有分化状态的细胞聚类:幼稚细胞、根据迁移和代谢特征区分的记忆细胞群、以颗粒酶K(GZMK+)、XC基序趋化因子配体1(XCL1+)和细胞毒性(CTL)特征为标志的效应记忆细胞、干扰素刺激基因高表达(ISG-high)细胞群、表达热休克蛋白HSPA6+或核受体NR4A1+的应激反应细胞、NK样细胞以及终末耗竭(Tex)细胞(图3A-B)。类似地,CD4+ T细胞分析鉴定了14个不同的细胞聚类,包括幼稚细胞;具有特异性cAMP反应元件调节因子(CREM +)TGFB1+特征的记忆亚群;根据叉头框蛋白P3和肿瘤坏死因子受体超家族成员18 (FOXP3+TNFRSF18+)、IKAROS家族锌指蛋白2 (IKZF2+) 以及FOXP3+颗粒溶素 (GNLY+) 的表达模式分化的调节性T细胞;增殖细胞;抗原呈递样(APC样)细胞;滤泡辅助细胞群,包括一个特化的G0S2+亚群;Th17细胞;应激反应性HSPA6+和NR4A1+细胞群;以及耗竭细胞,共同代表了肿瘤浸润T淋巴细胞多样化的功能图谱(图3G-H)。值得注意的是,CD8+和CD4+T细胞的亚群丰度在IC组和IS组之间没有差异(图3C-D,图3I-J)。
为了从功能上评估与免疫抑制相关的潜在T细胞扰动,他们对IS和IC进行了全面的DEG和通路分析(图3E-L)。该分析揭示了CD8+ T细胞中2947个DEG,其中IS样本表现出CTL效应通路(颗粒酶B [GZMB]、穿孔素1 [PRF1]和干扰素γ [IFNG])的下调和耗竭标志物(程序性细胞死亡蛋白1 [PDCD1]、细胞毒性T淋巴细胞相关蛋白4 [CTLA4]和具有Ig和ITIM结构域的T细胞免疫受体 [TIGIT])的上调。同样,CD4+ T细胞在IS样本中表现出2181个DEG,其中调节性和免疫抑制程序富集。IPA证实IS样本中多种细胞类型(CD8)的抗肿瘤免疫通路受到抑制。
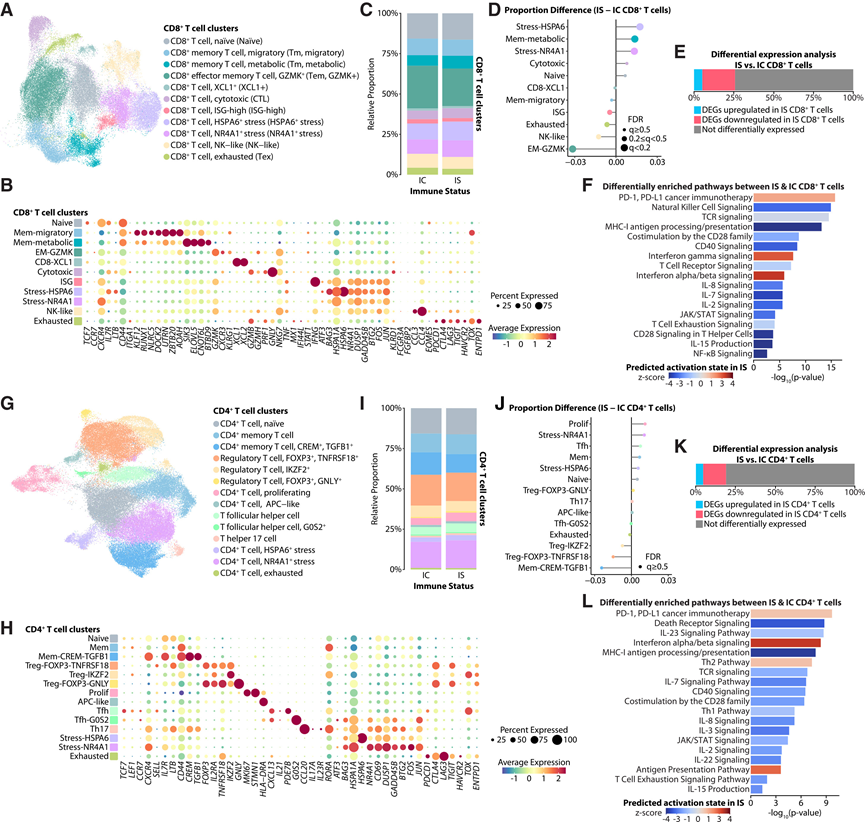
图3. T细胞亚群分析揭示了IC和IS NMSC患者肿瘤中CD8+和CD4+ T细胞的不同亚群。
(A) 带有T细胞亚群注释的IC和IS患者肿瘤中CD8+ T细胞的UMAP可视化图。(B) 用于识别CD8+ T细胞类型的经典基因标记点图。(C) 比较IC与IS患者肿瘤中CD8+和CD4+ T细胞亚群相对比例的条形图。(D) 点图显示IS与IC肿瘤之间CD8+ T细胞亚群的差异。 (E) 累积直方图显示IS与IC CD8+ T细胞之间的DEG数量,展示IS肿瘤中基因上调、下调或未改变的比例。(F) IS与IC CD8+ T细胞间的通路富集分析,突显关键的免疫激活和信号传导通路。条形颜色代表IS样本中预测的激活状态(Z分数)。(G) 带有T细胞亚群注释的IC与IS患者肿瘤中CD4+ T细胞的UMAP可视化图。(H) 用于识别CD4+ T细胞类型的经典基因标记点图。(I) 比较IC和IS患者肿瘤中CD4+ T细胞亚群相对比例的条形图。(J) 点图显示IS与IC肿瘤之间CD4+ T细胞亚群的差异,圆圈大小表示FDR显著性。(K) 堆叠直方图显示IS与IC CD4+ T细胞之间的DEG数量,展示IS肿瘤中基因上调、下调或未改变的比例。(L) IS与IC CD4+ T细胞中的通路富集分析,突显关键的免疫激活和信号通路。
04
T 细胞克隆扩增和克隆型多样性降低
接下来,他们评估了CD8+和CD4 + T细胞亚群的克隆型多样性(图4A -D)。抗原呈递细胞(APC),包括巨噬细胞和cDC2树突状细胞,可将抗原呈递给CD4+和CD8+ T细胞,从而促进它们的克隆扩增和多样化。对伴有NMSC的IC和IS患者中T细胞克隆扩增的全面评估显示,IS肿瘤中过度扩增的CD8+ T细胞克隆型的数量显著低于IC肿瘤(图4A-D)。他们使用多种多样性指数对不同T细胞群体的TCR多样性进行了全面评估(图4E-F)。与 IC 患者相比,IS 患者的 TCR 多样性在两个主要 T 细胞亚群中均显著降低。
利用这些数据,他们接下来试图识别T细胞群体间的抗原共有情况(图4G)。使用Morisita指数进行的克隆重叠分析揭示了IC和IS肿瘤微环境之间的差异。IC肿瘤中CD8+ T细胞亚群间表现出中等程度的TCR共存,其中EM_GZMK和Stress_NR4A1聚类之间存在显著的克隆重叠,而Stress_HSPA6、NK样、幼稚和Mem_migratory细胞群之间则存在中等程度的共存。IS肿瘤维持了EM_GZMK-Stress_NR4A1相关性,但总体而言,聚类间TCR相似性较弱,尤其在NK样聚类中,与IC样本相比,共享模式的降低更为明显。IS肿瘤中大多数CD8+ T细胞亚群间普遍较弱的克隆共享,虽然保留了一些核心的应激效应细胞连接,但表明其TCR库更为受限,这与NMSC肿瘤微环境中慢性免疫抑制导致的克隆多样化受限相一致。
CD4+ T细胞的克隆重叠分析显示出与CD8+ T细胞群截然不同的模式(图4H)。IC肿瘤的聚类间相似性极低,相关性较弱,这与CD4 + T细胞分化分隔和维持离散的功能特性相符。相比之下,IS肿瘤的聚类间TCR相似性增加,尤其在Stress_NR4A1、Stress_HSPA6、Prolif和幼稚型T细胞聚类之间共享性增强,且调节性T细胞(Treg)群内的相关性也强于IC样本。IS肿瘤中幼稚型、增殖型和应激相关亚群之间克隆重叠的增加表明克隆多样性有限,且共有克隆在多种激活状态下扩增,提示IS TME中CD4+ T细胞的区室化受损。
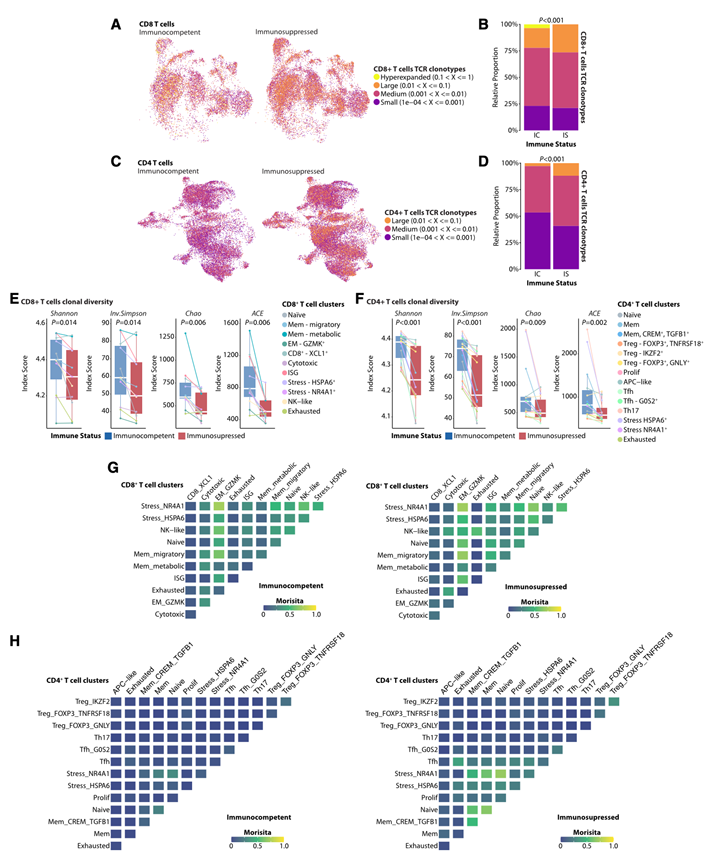
图4. 单细胞TCR测序揭示免疫抑制(IS)非黑色素瘤皮肤癌患者肿瘤中T细胞克隆扩增减少及克隆型多样性降低。
(A-D) CD8+ (A) 和CD4+ (C) T细胞聚类的UMAP可视化,以及来自IC或IS患者的肿瘤组织中具有扩增TCR克隆型的CD8+和CD4+T细胞比例的比较。
(E-F) 分别对IS与IC肿瘤中CD8+和CD4+ T细胞聚类的TCR克隆多样性指数评分进行比较。(G-H)使用Morisita指数分别分析各样本组中CD8+和CD4+ T细胞的细胞聚类克隆重叠情况。
05
免疫抑制与肿瘤微环境中免疫细胞分布和相互作用的紊乱有关
来自IS患者的NMSC TME中某些固有免疫细胞群的分布与IC患者样本中的分布存在差异,这与T细胞受体(TCR)库的改变、T细胞多样性降低以及TCR克隆扩增的改变有关。TME内细胞的空间邻近性对于抗原呈递或共刺激分子识别等过程至关重要,也是有效免疫应答的必要条件。为了评估NMSC TME内分子和功能不同的免疫细胞群的空间分布改变是否会导致抗肿瘤免疫应答不良,他们使用Xenium平台对来自45例cSCC患者(23例IC和58例IS)的81个样本进行了单细胞空间转录组分析。针对多种细胞类型设计了一个包含350个基因的定制靶向基因panel,这些细胞类型包括肿瘤细胞、成纤维细胞、内皮细胞和免疫细胞,例如T细胞、B细胞、NK细胞、树突状细胞和髓系细胞(图5A)。随后,对样本进行苏木精-伊红(H&E)染色,结果与病理学家标注的空间分布图一致(图5B)。
对来自全部 81 个 cSCC 样本核心的细胞进行无监督聚类分析,鉴定出 19 个聚类,这些聚类基于差异表达最显著的基因标记进行注释,并代表了TME的不同组成部分(图 5A)。这 19 个 UMAP 聚类包含 8 个具有角质形成细胞 (KC)、癌症干细胞和神经嵴样特征的肿瘤聚类。每个核心主要包含肿瘤聚类(例如,增殖性 KC-NEFL高表达肿瘤聚类和癌症干细胞-PROM1高表达肿瘤聚类),但不同核心的具体聚类有所不同(图 5B)。为了评估数据在不同样本间的有效性,首先确认每个聚类均由 IC 和 IS 患者样本代表。高分辨率空间图谱分析表明,基于转录组的空间注释肿瘤区域与 cSCC 样本上组织学定义的肿瘤区域准确对应(图 5B)。他们鉴定了两个巨噬细胞聚类,分别包含CD163+CD68+CXCL9 high和CD163+CXCL12 high细胞,以及一个T细胞聚类(图5A-B)。他们进一步对这些聚类中的免疫细胞(包括巨噬细胞和T细胞)进行亚型分类,方法是利用scRNA-seq注释中使用的标记进行插值,从而基于细胞类型生成UMAP聚类(图5C)。他们应用了与scRNA-seq数据分析中相同的巨噬细胞亚群聚类方法,并成功鉴定了所有6个巨噬细胞亚群(图S4B和S4C),其中ECM-Deg TAM是主要细胞群(图S4D)。这些分析进一步强调了多组学方法在评估和交叉验证TME内细胞间相互作用(CCI)细微差别方面的重要性。
为了直接评估免疫细胞、基质细胞和肿瘤细胞之间的细胞间相互作用(CCI),他们采用了基于空间背景下基因共表达的stLearn方法(图5F-J)。该分析揭示了配体-受体(LR)对及其所在细胞类型的邻近区域之间存在显著的相互作用。这些相互作用是通过对空间共表达的LR对进行置换检验计算得出的,检验的是观察到的邻近区域共表达是否高于预期(图5G-H)。对整个队列中免疫细胞和基质细胞群的CCI计数进行患者水平定量分析发现,B细胞、脂质相关TAM、增殖相关TAM和单核细胞在免疫细胞(IC)样本中的细胞间相互作用节点显著多于IS样本(图5I)。虽然在目前的样本量下差异并不显著,但与IC样本相比,IS样本中CD4+T细胞、CD8+ T细胞和IFN-TAM的CCI计数均有所降低(图5 I)。直接CCI分析显示,包括ECM降解TAM、IFN-TAM、增殖性TAM和CD8+ T细胞在内的免疫细胞群与其他免疫细胞、内皮细胞、成纤维细胞和肿瘤细胞之间存在多种异型相互作用。相比之下,肿瘤细胞主要表现为同型相互作用,而非癌细胞-免疫细胞相互作用(图5H)。在已鉴定的显著LR配对中,APC与耗竭T细胞之间的相互作用,例如LGASL3-LAG3、LTB-CD40和CXCL12-CD4,在IS样本中较IC样本呈现增加趋势。统计学意义的缺失可能归因于空间数据集中免疫细胞相对于肿瘤和成纤维细胞群的丰度显著降低。空间数据集中免疫细胞相对于肿瘤和成纤维细胞群的代表性不足可能会降低检测相互作用差异的统计效力。为了探究APC和CD8+ T细胞之间的相互作用,重点关注CD8+ T细胞丰度大于20%的微环境,其中包括7个IC样本和20个IS样本。在这些微环境中,与IC样本相比,IS样本显示出细胞外基质(ECM)降解肿瘤相关巨噬细胞(TAM)、干扰素诱导的TAM(IFN-TAM)、单核细胞(p = 0.05)以及放射治疗巨噬细胞(RTM)(p = 0.018)比例降低的趋势(图5J)。这些数据表明,在CD8+ T细胞与CD8+ T细胞相互作用的巨噬细胞群组成存在差异。在IC和IS肿瘤之间存在富含T细胞的微环境。总体而言,NMSC的免疫抑制特征是巨噬细胞和T细胞与TME中特定空间微环境中的肿瘤细胞相互作用减少,这可能导致免疫功能障碍。
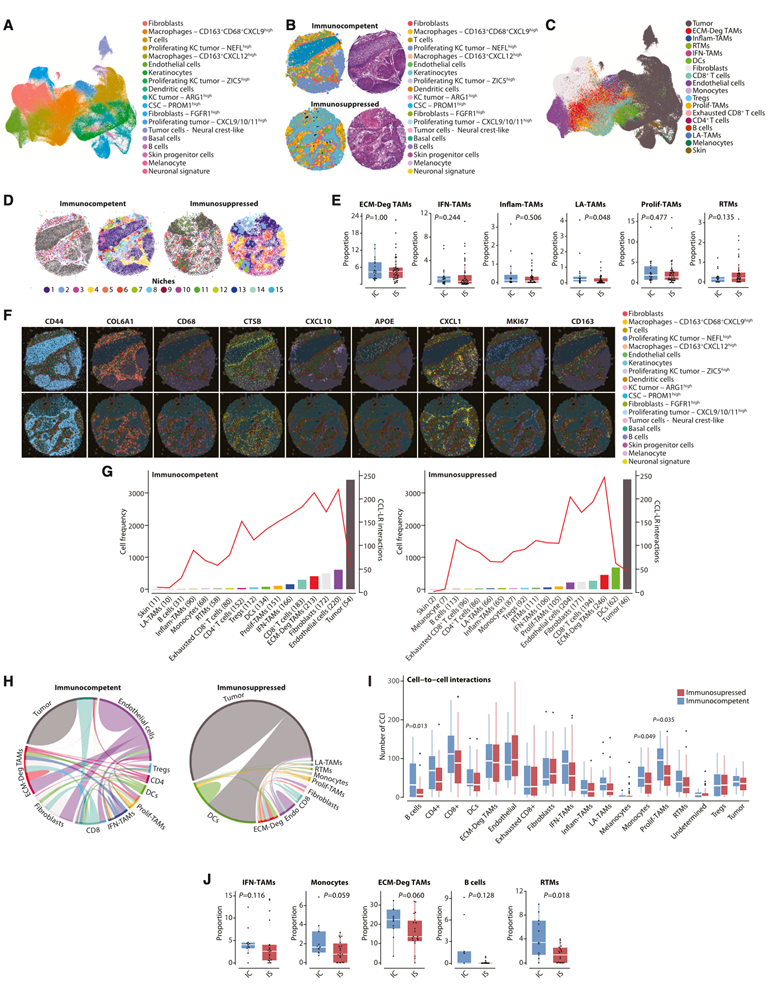
图5. 基于Xenium技术的单细胞分辨率NMSC肿瘤免疫监视空间图谱。
(A) 将组织芯片中81个样本核心的350个靶基因表达数据进行无监督聚类分析,并通过UMAP嵌入展示。(B) HE染色。(C) 将单细胞RNA测序(scRNA-seq)获得的免疫细胞类型特征与Xenium衍生的细胞聚类整合。通过UMAP可视化及Xenium空间图谱展示来自IC(样本11I)和IS(样本15C)患者的浸润性SCC代表性样本,其中细胞类型注释来源于scRNA-seq与Xenium数据的整合分析。(D) 按细胞类型降序排列的IC(样本11I)和IS(样本15C)患者浸润性鳞状细胞癌代表性样本中的肿瘤内微环境区域频率。(E) IC(n = 20)与IS样本(n = 46)中肿瘤富集微环境内巨噬细胞亚型比例的箱线图。(F) 在IC患者(样本11I)和IS患者(样本15C)侵袭性鳞状细胞癌代表性样本的空间图中,肿瘤、成纤维细胞及巨噬细胞亚型特异性转录本的点分布情况。(G-H) stLearn在IC(样本11I)和IS(样本15C)患者侵袭性鳞状细胞癌代表性样本中预测的细胞类型频率、CCI-LR相互作用数量的组合柱状图与折线图,以及(H) 表示预测CCI的弦图。(I) 对免疫细胞、基质细胞和肿瘤细胞中CCI数量在IS与IC患者样本间的队列(n = 81)分析。 (J) 在CD8+ T细胞富集微环境中,IC与IS样本中抗原呈递细胞(APC)亚群比例的箱线图。
06
空间ATAC测序揭示了IC和IS TME中表观遗传调控和染色质可及性的差异
抗原呈递机制的表观遗传失调是癌细胞逃避免疫监视的关键机制之一。为了识别可能参与肿瘤固有免疫-适应性免疫相互作用的表观遗传调控机制,他们采用组织测序确定性条形码(DBiT-seq)方法,进行了转座酶可及染色质测序的空间分析(spatial-ATAC-seq)。Spatial-ATAC-seq 能够结合空间信息分析染色质可及性,从而深入了解基因组中哪些区域在其天然空间环境中积极参与基因调控。对来自 14 例NMSC患者的样本进行了 spatial-ATAC-seq 分析,这些患者包括cSCC和BCC。
无监督聚类分析识别出12个空间表观遗传(spEP)聚类(图6A)。基于全基因组定位对每个聚类中识别出的开放染色质峰进行了注释,发现这些峰分布于基因的启动子、外显子和内含子区域,以及转录末端位点的远端。这些聚类的归一化比例分布于本研究包含的大多数样本中。在微流控芯片上进行spEP分析的样本中,分析会根据微流控芯片行和列的交点生成一个原位xy坐标系。这会产生一个称为tixel的方形组织单元。将spEP聚类映射到NMSC肿瘤样本的tixel坐标上,揭示了肿瘤富集区和肿瘤周围区域不同的空间模式(图6B)。除成纤维细胞2/CD8+ CTL T细胞聚类(C5)外,肿瘤和TME spEP聚类的标准化比例在IS组和IC组之间未显示出显著差异(图6C)。重要的是,未观察到样本不同区域间聚类比例的显著差异。为了验证这些发现,他们将空间ATAC-seq数据与空间转录组数据整合。该分析表明基因活性和基因表达具有显著的一致性,其中差异最显著的细胞类型特异性基因特征表现出一致的表观遗传和转录激活(图6D-E)。
针对肿瘤细胞(KRT5)、间质成纤维细胞(PDGFRA)、巨噬细胞(CD68)和RTMs(CD163)等选择性标记基因的基因可及性空间模式表明,空间ATAC-seq能够定位巨噬细胞至肿瘤和间质区域,并揭示其染色质可及性以及在与TME内其他细胞相互作用时可能发生的调控变化(图6F)。
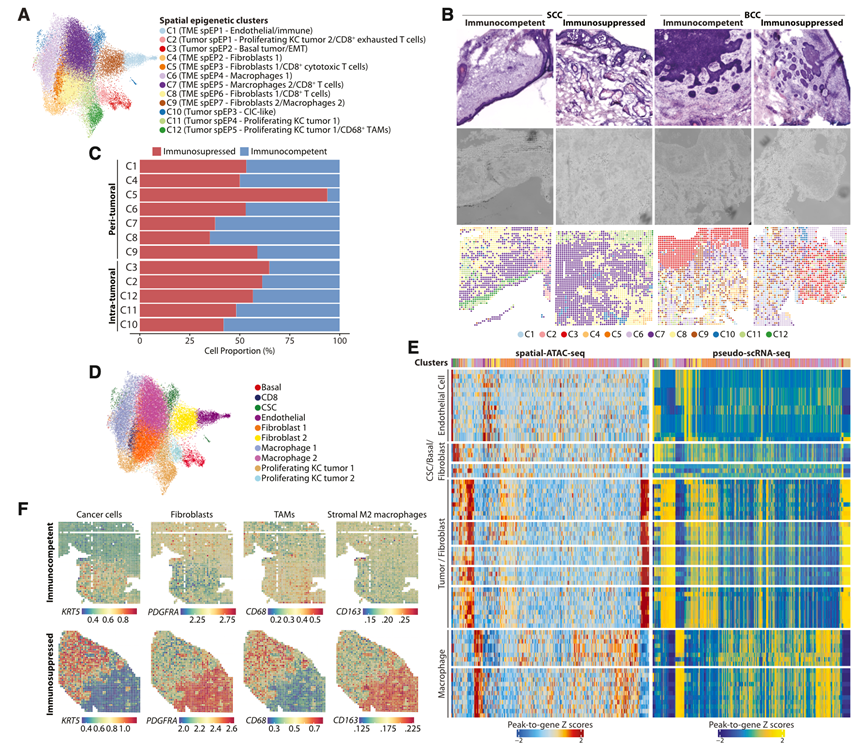
图6. 空间表观基因组分析揭示了非黑色素瘤皮肤癌(NMSC)肿瘤区和基质区内的独特免疫相互作用。
(A) 染色质可及性无监督聚类分析的UMAP嵌入图。(B)代表性基底细胞癌(BCC)和鳞状细胞癌(SCC)组织切片中空间表观基因组聚类的空间分布。(C) IS和IC肿瘤样本中肿瘤内及肿瘤周区域聚类的归一化细胞比例。(D) 将Xenium细胞类型特征与来自空间ATAC-seq数据的UMAP聚类进行整合。(E) 用于整合空间数据中细胞类型特征的ATAC和RNA特征的峰到基因Z分数热图。(F) 在基底细胞癌(BCC)代表性IC和IS样本中,KRT5(肿瘤标志物)、PDGFRA(间质标志物)、CD68(TAM标志物)和CD163(RTM标志物)的GAS空间分布图。
07
在IC和IS TME中观察到差异性邻近关系和转录因子基序富集
为了系统地分析这些相互作用及其如何影响NMSC TME内不同微环境中的转录,他们通过计算聚类特异性空间共定位倾向性进行了邻域分析。癌起始细胞样肿瘤聚类(C10)具有最高的同型聚类得分,表明其与其他聚类的相互作用最少,并形成了同型微环境。使用来自IC和IS患者的样本进行成对异型邻域分析,确定了具有不同表观遗传特征的聚类之间的空间关系,并表明肿瘤聚类如C11-C12和C2-C3具有最高的异型聚类关联性。在TME细胞聚类中,内皮/免疫细胞聚类(C1)和成纤维细胞2/巨噬细胞2细胞聚类(C9)最倾向于通过彼此靠近形成空间微环境,这表明内皮免疫微环境存在于成纤维细胞之间。TME成纤维细胞1(C4)和成纤维细胞1/CD8+ CTL T细胞(C5)细胞聚类经常与另一个类似的细胞聚类(C8)位于同一位置,表明CD8+ T细胞主要与成纤维细胞1细胞类型相关。差异邻域分析发现IS和IC样本之间的异型细胞聚类存在差异(图7 A)。在IC患者中,表观遗传学定义的巨噬细胞2细胞(C9)可能比在IS患者中更靠近增殖的KC肿瘤1细胞(C12)(图7 A-B)。同样,IC 患者肿瘤细胞聚类(C10/C11)附近的巨噬细胞 2(C7)数量高于 IS 患者(图 7A)。在 IC 肿瘤中,肿瘤细胞附近更常见具有与炎症、增殖和干扰素反应性 TAM 状态一致的表观遗传特征的巨噬细胞,包括补体(C1QA/C1QC)和抗原加工(CTSS)基因座附近的富集,以及主要组织相容性复合体(MHC)II 类基因座(HLA-DQA1、HLA-DQB1 和 HLA-DRB1)的基因活性增强。
为了更深入地了解决定免疫细胞表观遗传状态的关键调控因子及其如何因NMSC患者的免疫状态而异,他们检测了IC和IS样本中开放染色质区域转录因子(TF)结合基序的富集情况,并鉴定出不同的调控程序。包含CD68+肿瘤相关巨噬细胞(TAM)和C12富集了多种TF基序,包括MAF,MAF是TAM免疫抑制功能的关键驱动因子。在IC样本中,表观遗传定义的CD68+TAM(C12)与成纤维细胞和其他巨噬细胞(C9)紧密相邻(图7 A-B)。与此结果相反,IS样本中表观遗传学定义的成纤维细胞1(C4和C8)聚类与CD8+ CTL T细胞聚类(C5)、CD8+耗竭T细胞聚类(C2)或C10紧密相邻(图7A-B)。聚类8富集了TCF7,TCF7是一种调控T细胞发育和分化的转录因子;而C4和C5富集了NANOG和E2F。聚类1富集了CUX1,CUX1介导基质成纤维细胞的炎症反应;聚类7富集了RUNX1基序,RUNX1基序调控肿瘤相关成纤维细胞的功能;聚类9富集了SOX2,SOX2促进肿瘤相关成纤维细胞介导的肿瘤生长。这些数据表明,具有活跃的 MAF 调节程序的巨噬细胞可能是 CD68+ TAM 在 IC 患者中发挥免疫调节功能的基础,而具有高CUX1活性的表观遗传定义的炎症成纤维细胞群可能通过空间调节表达 TCF7 的 CD8+ T 细胞,导致 IS 患者免疫功能低下。
比较IS和IC NMSC患者伪样本数据中富集的TF基序,结果显示IS患者中ETS、HNF4、SPI1和ETV4基序的富集程度不同,而IC患者中GRHL1、TP53、TP63、POU2F2和FOXF2基序的富集程度不同(图7C)。这些主要基序的空间分布表明,GRHL1富集的基序与肿瘤聚类相关,而HNF4富集的基序与TME相关。值得注意的是,C12肿瘤聚类中CD68高表达巨噬细胞的丰度最高(图7D)。在该聚类中,IC患者(而非IS患者)的开放染色质区域ATF3基序高度富集(图7E)。 ATF3 构成细胞适应性反应网络的核心,并调控促炎基因的表达。空间映射证实,在肿瘤富集区域相关区域,ATF3 基序高度富集(图 7F)。值得注意的是,IS 患者的 ATF3 全局 GAS 值高于 IC 患者(图 7G),提示 IS 患者的 CD68+ TAM中 ATF3 信号通路增强。这可能有助于阐明IS 患者CD68+TAM的抗炎表型机制。
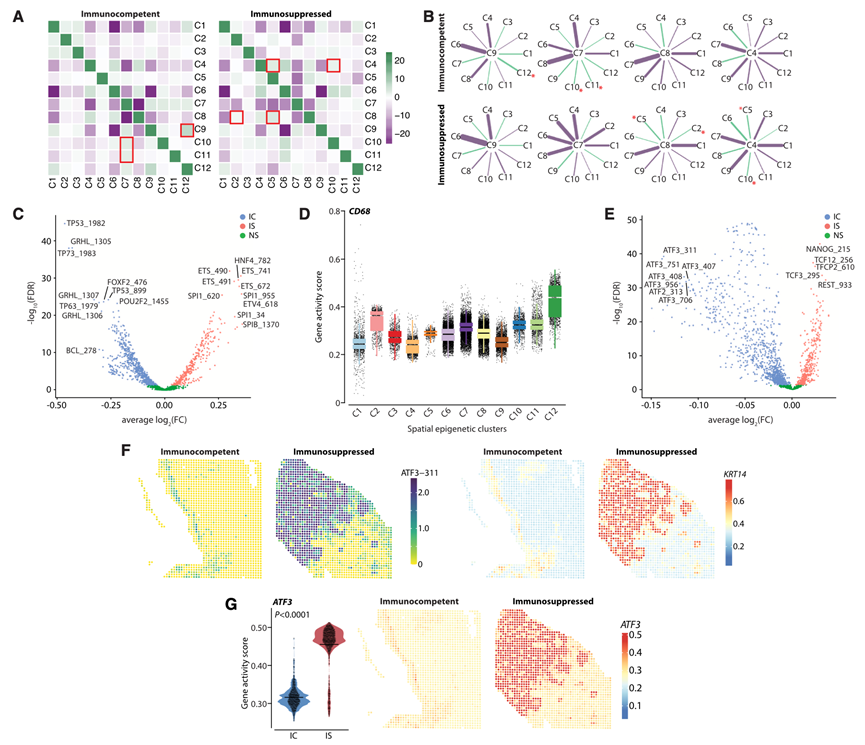
图7. IC和IS TME表现出差异化的邻近关系及转录因子(TF)基序富集。
(A) 使用异型性评分量化免疫功能正常(IC)和免疫抑制(IS)NMSC患者空间聚类之间的成对邻近关系的热图。(B) 邻近关系基于IC和IS患者的时空数据。在IC和IS组中显著不同的聚类相互作用以红色星号标出。(C) IS与IC样本中差异富集的TF基序火山图。FDR为假发现率;FC为倍数变化。(D) CD68 GAS在各聚类间的箱线图。肿瘤聚类12中CD68 GAS值较高。GAS为基因活性得分。(E) 聚类12中IS与IC NMSC样本中差异富集的TF基序火山图。(F) ATF3 TF基序偏离分数在代表性IC和IS NMSC样本中的空间分布图,其中肿瘤区域通过KRT14高基因活性得分得到确认。(G) IC和IS NMSC样本基因活性得分的直方图。代表性IC和IS样本中ATF3基因活性得分的空间分布图。
+ + + + + + + + + + +
结 论
本研究利用整合的多组学技术、多重免疫荧光和空间表观基因组分析技术,对免疫功能正常和免疫抑制的肿瘤进行研究,发现免疫细胞分布、空间组织和T细胞克隆性存在差异,但总体免疫细胞组成基本保持不变。免疫抑制的肿瘤表现出肿瘤内巨噬细胞密度降低、T细胞克隆多样性减少、抗原呈递细胞和T细胞的空间相互作用改变,以及独特的成纤维细胞和巨噬细胞相关的空间微环境。通过互补的空间和单细胞平台进行的多队列验证,IS的肿瘤中先天性和适应性免疫组织存在一致的改变。这些发现共同定义了全身免疫抑制下肿瘤免疫微环境的空间和功能重塑,并为未来对高危患者的治疗研究提供了框架。
+ + + + +