
 English
癌症恶病质 wasting 的“幕后推手”找到了?Nature Metabolism:一碳代谢是跨组织代谢重编程的核心
一句话结论
2026年1月,Nature Metabolism 发表 Resource 研究:Morigny、Rohm 等人用 C26 小鼠癌症恶病质模型,对血浆、肝脏、脂肪、心肌、骨骼肌等 8 种组织做代谢组 + 转录组 + 13C6-葡萄糖示踪,发现“一碳代谢(one-carbon metabolism)”在所有宿主组织中同步激活,是连接炎症、葡萄糖高代谢和肌肉萎缩的跨组织机制;该现象在 Panc02、8025、ApcMin、LLC、KPP 和 C26 共 6 个独立小鼠模型以及人源化 SW480 模型/临床肌少症患者中均得到验证。
什么是癌症恶病质?为什么难治?
癌症恶病质(cancer cachexia)是肿瘤患者最常见的消耗综合征,表现为非自愿体重下降、肌肉流失、功能衰退,是肿瘤高死亡率的重要原因之一。它的难点在于:
- 不是单纯吃不够:常规营养支持无法逆转; - 多器官协同失调:肿瘤、肝脏、肌肉、脂肪、心脏都会参与代谢重编程; - 缺乏统一机制:过去大多只研究单一组织或单一模型,缺少“全景图”。
这项工作的目标就是画出这张全景图。
实验设计:8 个组织、3 个阶段、多组学整合
研究使用 C26 结肠腺癌小鼠模型,设置 4 组:
- Ctrl:健康对照(PBS) - Non-cax:带瘤但不出现恶病质 - Pre-cax:恶病质前期(体重开始下降前) - Cax:典型恶病质(体重下降约 10%)
在注射 13C6-葡萄糖 1 小时后,取 8 种组织/体液:
- 血浆、肝脏、心脏 - eWAT(附睾脂肪)、iWAT(腹股沟脂肪) - GC 腓肠肌、比目鱼肌 - 肿瘤
技术栈:
- 非靶向极性代谢组学(LC-MS) - RNA 测序 - 13C6-葡萄糖稳定同位素示踪 - 数据可通过 WebApp 查询:https://m3cav.metabolomics.fgu.cas.cz/
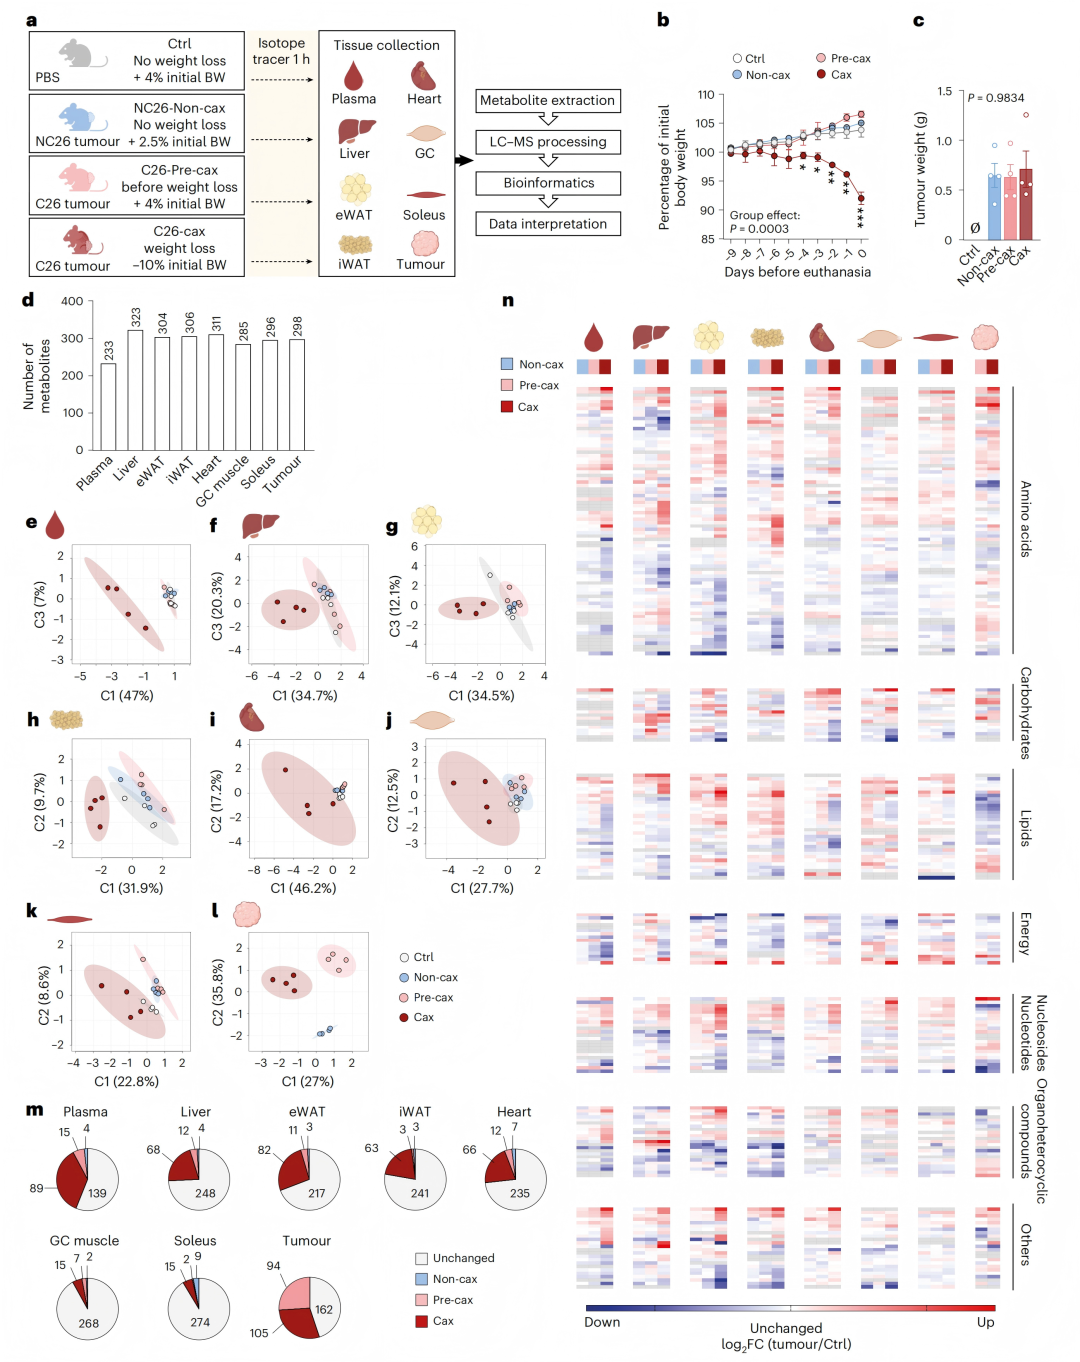
图1说明:a)实验设计示意图;b)小鼠体重变化曲线;c)肿瘤重量;d)各组织检测到的代谢物数量;e-l)主成分分析显示不同组织的代谢组随恶病质进展逐渐偏移;m)各组织代谢物显著变化的统计;n)肿瘤/对照 log2FC 热图。
发现一:恶病质不是单器官问题,而是多组织“协同应答”
研究者先把每个组织的代谢物按 Ctrl → Pre-cax → Cax 的假时间排序,聚成 8 类动态模式。结果:
- 最大的一类是 晚期向 Cax 状态上升 的代谢物,主要包括氨基酸类似物、核苷、有机杂环化合物; - 另一类是 晚期下降 的代谢物,主要与能量稳态有关(苹果酸、ATP、磷酸肌酸),提示能量亏空。
关键发现:所有宿主组织对恶病质的贡献程度相似,而肿瘤本身有更独特的代谢特征。这说明恶病质是全身多组织协同失调,而不是某一器官单独“坏掉”。
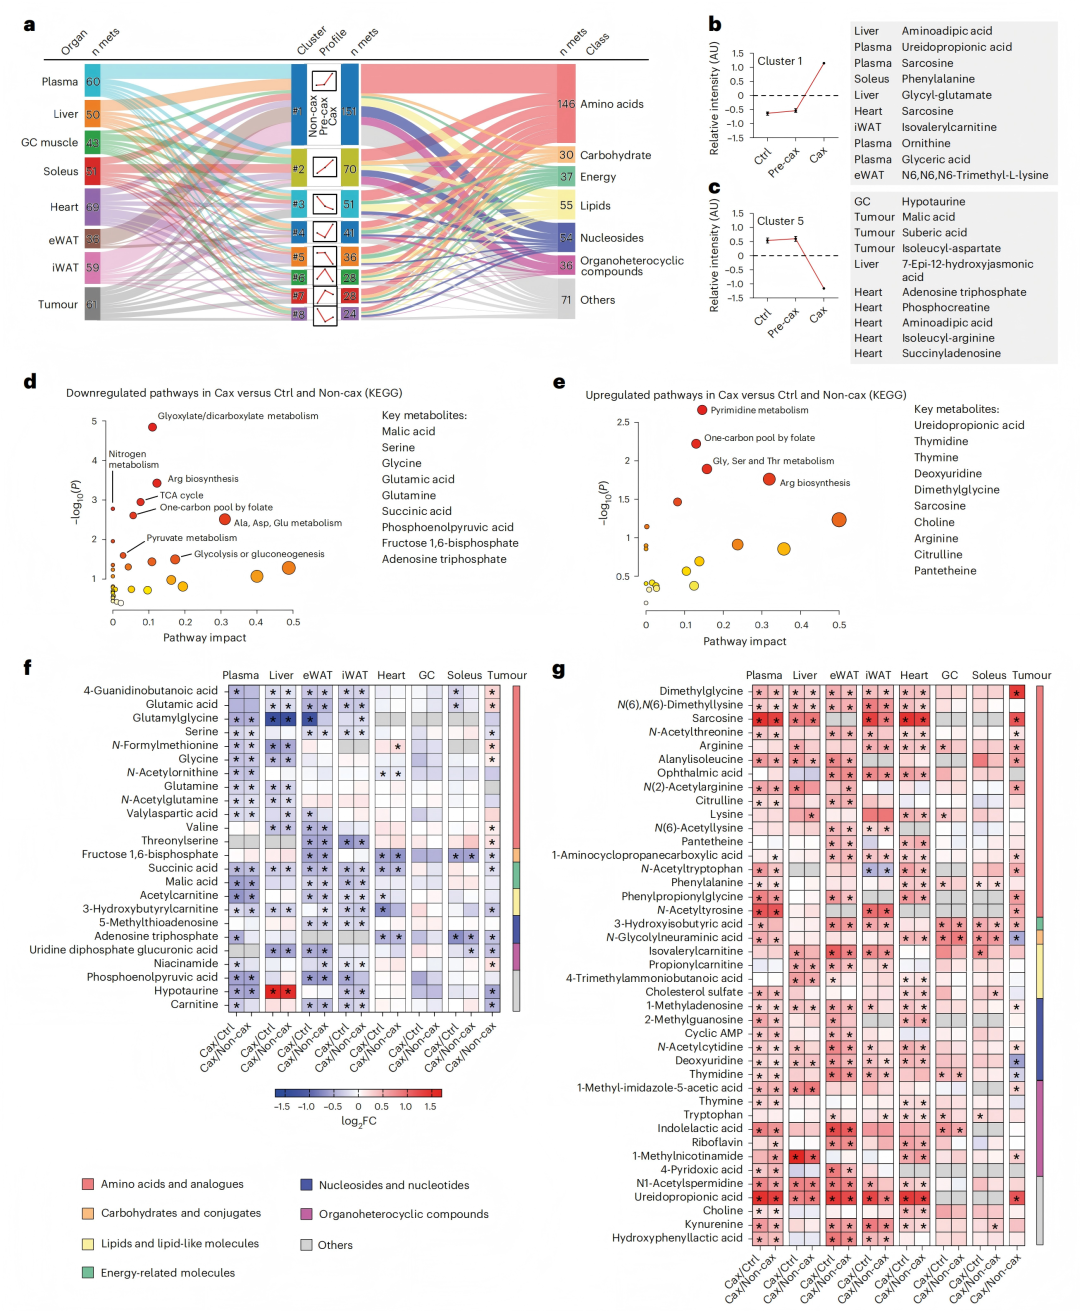
图2说明:a)桑基图显示各组织代谢物对 8 个动态聚类的贡献;b、c)Cluster 1 和 Cluster 5 的代表性代谢物;d、e)Cax vs Ctrl/Non-cax 下调/上调的 KEGG 通路气泡图;f、g)显著变化的代谢物热图,其中“氨基酸及类似物”是受影响最大的类别。
发现二:一碳代谢通路在所有宿主组织中同步上调
通路分析把研究者引向了一个核心通路:一碳代谢(one-carbon metabolism)。
在恶病质状态下:
- 底物被大量消耗:循环中的甘氨酸、丝氨酸(一碳单元供体)显著下降; - 产物堆积:肌氨酸(sarcosine)、二甲基甘氨酸(dimethylglycine)、1-甲基烟酰胺(MNAM)、胸苷(thymidine)、三甲基/二甲基赖氨酸等甲基化产物在血浆、肝脏、脂肪、肌肉、心脏中普遍升高。
也就是说,恶病质小鼠体内一碳代谢从“底物→产物”的通量明显增强,而且这是跨组织保守的。
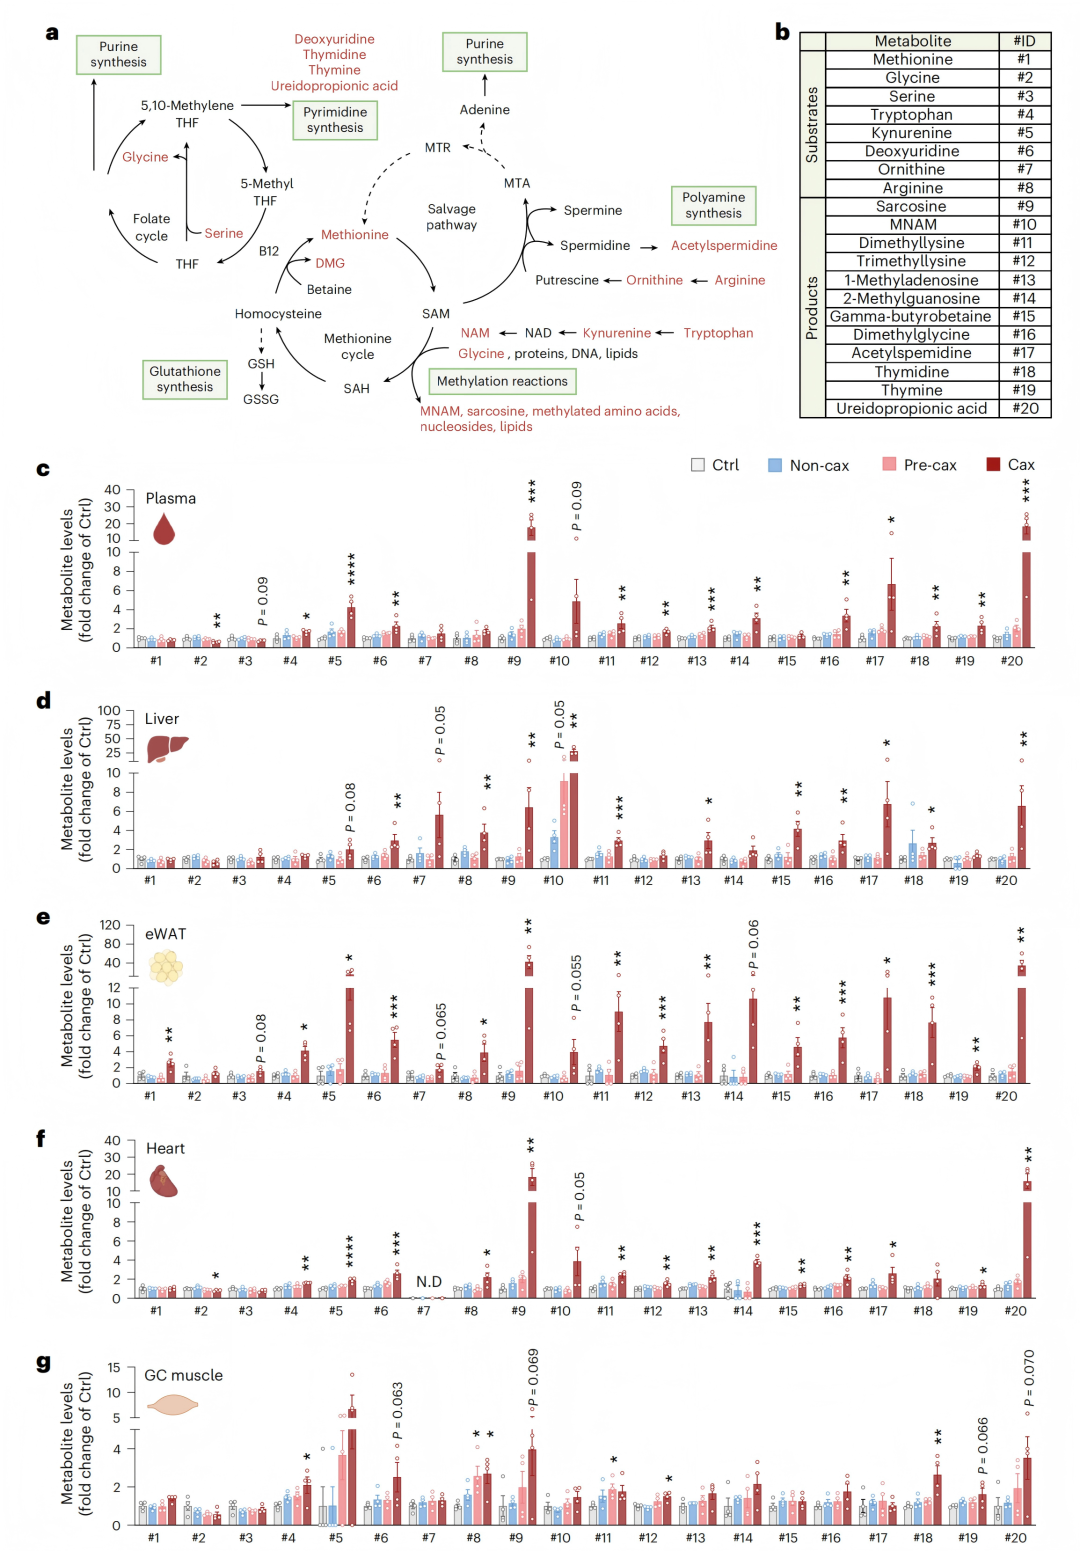
图3说明:a)一碳代谢通路概览(甲硫氨酸循环 + 叶酸循环 + 多胺代谢 + 谷胱甘肽合成);b)检测的 20 种一碳代谢相关底物/产物编号;c-g)血浆、肝脏、脂肪、心脏、骨骼肌中这 20 种代谢物的相对水平。
发现三:多组学整合锁定关键节点——IL6 是上游调控者
把代谢组与转录组整合后,研究者发现:
- 共同改变的通路包括 甲硫氨酸/叶酸循环、甲基转移酶、谷胱甘肽代谢、尿素/多胺循环; - 上游调控因子分析把 LPS / 炎症 排在第一位; - 在 C26 模型中已知的促恶病质因子 IL6 能显著调控这些关键节点: - 肝脏 Nnmt 被 IL6 中和抗体抑制 77%,被肿瘤细胞 IL6 敲除抑制 89%; - 一碳代谢产物(如 MNAM、胸苷、二甲基/三甲基赖氨酸)在 IL6 敲除后几乎不再富集。
这提示:肿瘤分泌的 IL6 等炎症信号,驱动宿主组织一碳代谢重编程。
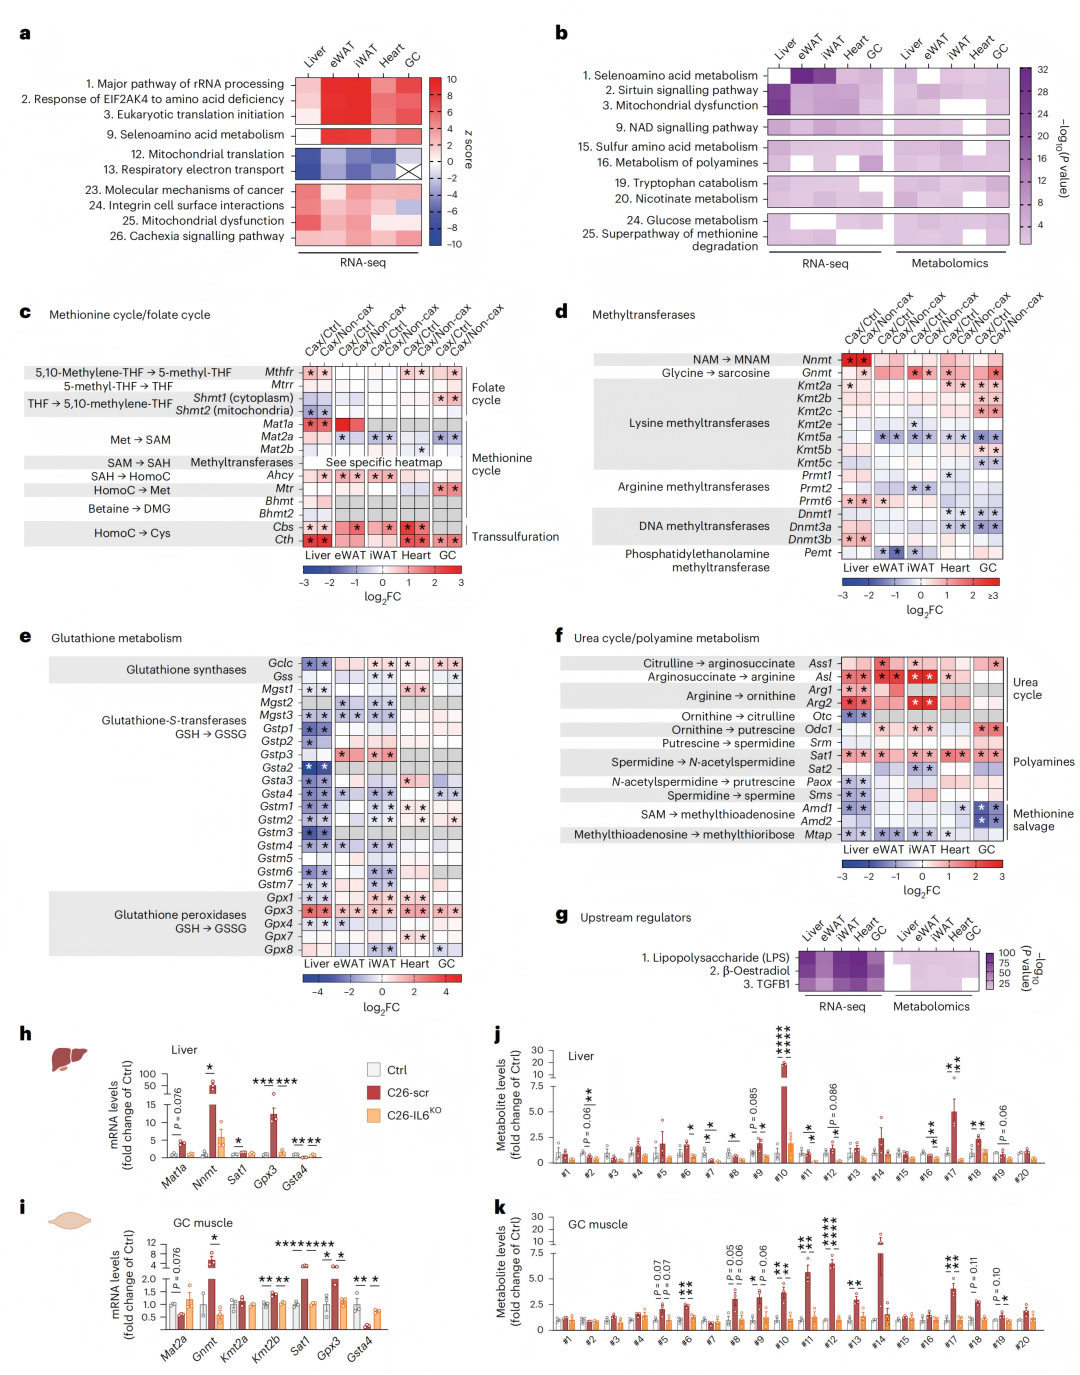
图4说明:a)Cax vs Ctrl 各组织共同改变的 top 通路;b)转录组+代谢组共同改变的通路;c-f)甲硫氨酸循环、甲基转移酶、谷胱甘肽代谢、尿素/多胺循环相关基因表达热图;g)上游调控因子;h-k)IL6 敲除或 IL6 中和抗体对关键酶基因和一碳代谢产物的影响。
发现四:甲硫氨酸过激活足以诱发肌管萎缩和代谢功能障碍
为了功能验证,研究者在 C2C12 肌管中加入不同浓度 L-甲硫氨酸:
- 0 μM、20 μM、100 μM 处理 48 小时; - 结果:L-甲硫氨酸剂量依赖性地诱导肌管萎缩(肌管直径减小); - 同时葡萄糖消耗增加、培养基 pH 下降,提示代谢亢进; - 13C6-葡萄糖示踪显示,甲硫氨酸处理后肌管中 TCA 循环代谢物标记增强,说明葡萄糖通量被重定向到能量生成。
这意味着:单纯过度激活一碳代谢入口(甲硫氨酸)就能复制出恶病质的两个核心表型——肌肉萎缩 + 葡萄糖高代谢。
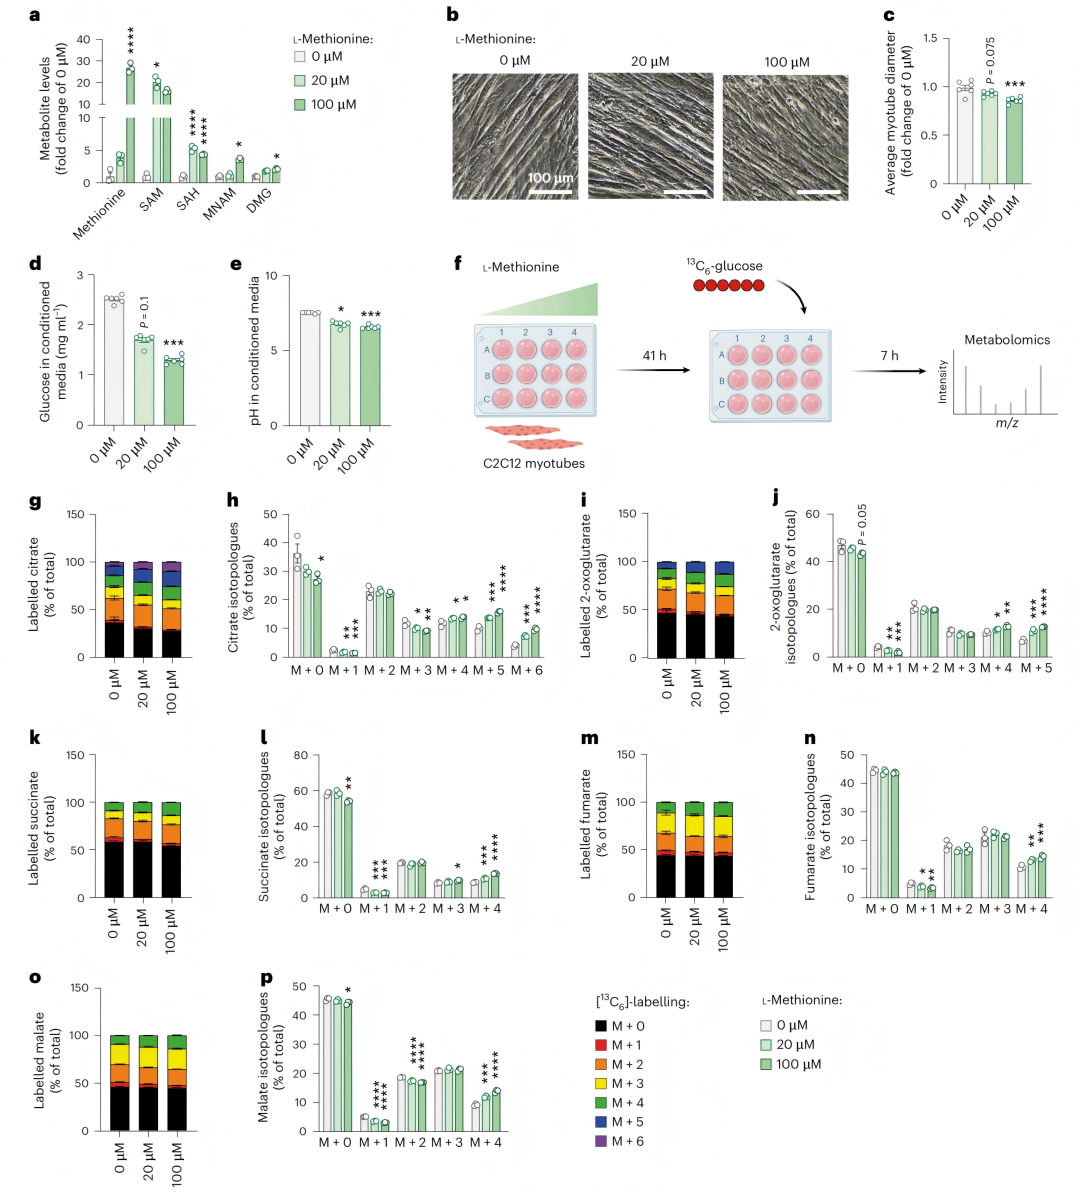
图5说明:a)不同浓度 L-甲硫氨酸处理后一碳代谢相关代谢物水平;b)肌管形态代表图;c)肌管直径定量;d)培养基葡萄糖;e)培养基 pH;f)13C6-葡萄糖示踪实验设计;g-p)TCA 循环代谢物的同位素标记结果。
发现五:肌肉葡萄糖通量被“重写”
在体内,研究者用 13C6-葡萄糖示踪观察 C26 小鼠骨骼肌和心肌:
- 总 TCA 代谢物水平下降或不变(能量亏空); - 但 标记的 TCA 代谢物比例升高,尤其高标记同位素体(M+4 及以上)增加; - 这一现象在 GC 肌、比目鱼肌、心脏中均存在。
结论:恶病质肌肉的葡萄糖不是没被利用,而是被 更快地“烧掉”进入 TCA 循环,呈现高代谢状态。这与临床上恶病质患者静息能量消耗升高的现象一致。
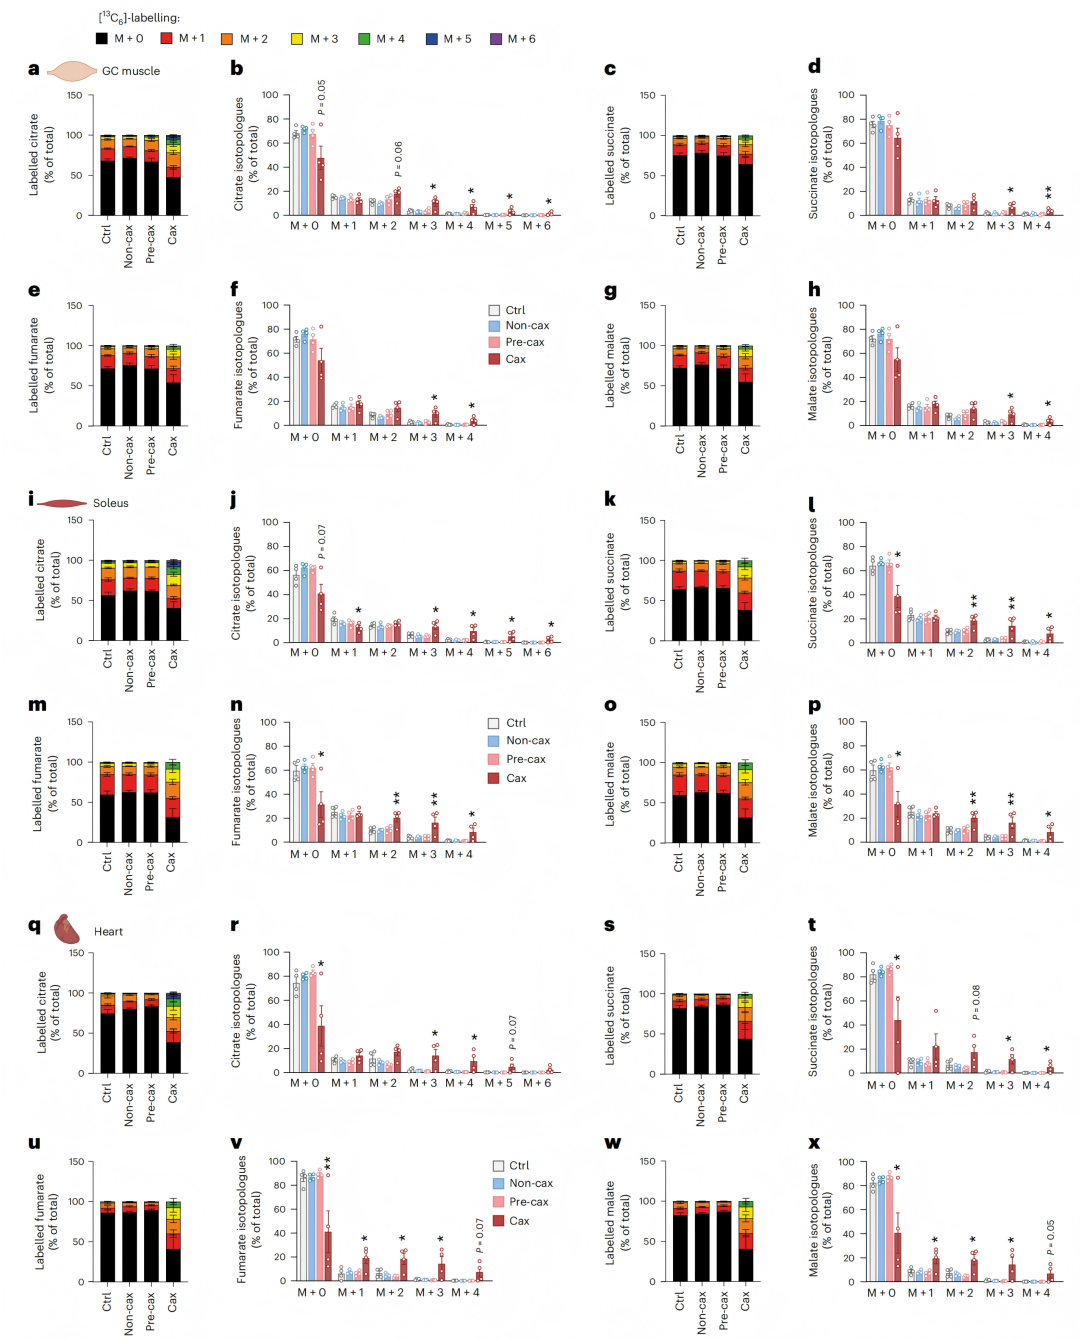
图6说明:a-x)13C6-葡萄糖在 GC 肌、比目鱼肌、心脏中的同位素标记模式;Cax 组显示 TCA 循环代谢物标记增强,提示葡萄糖通量增加。
发现六:跨 6 个独立小鼠模型验证——一碳代谢是保守 hallmark
研究者还检测了另外 5 种小鼠模型:
- Panc02:胰腺导管腺癌,轻度恶病质 - 8025:胰腺导管腺癌,轻度和重度恶病质 - ApcMin:遗传性肠道息肉模型 - LLC:Lewis 肺癌 - KPP:Kras 诱导胰腺癌
结果:所有模型中,一碳代谢相关酶基因和代谢物在肝脏、肌肉、脂肪等组织中都呈现一致上调,且与恶病质严重程度相关。这说明一碳代谢激活不是 C26 模型特有,而是癌症恶病质的共性特征。
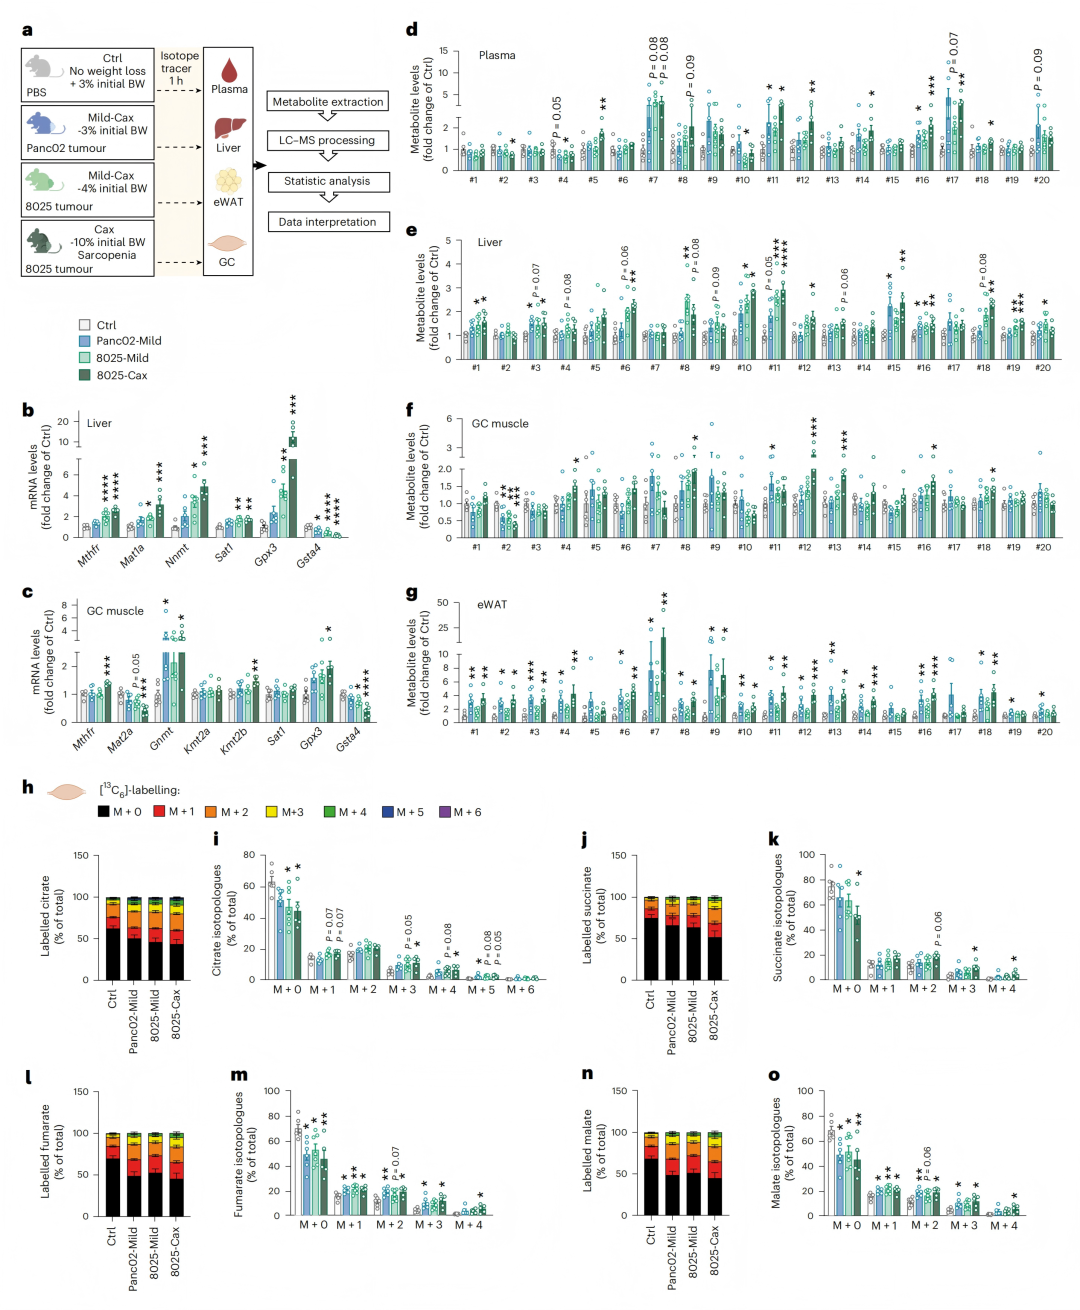
图7说明:a)跨模型实验设计;b、c)一碳代谢关键酶基因在肝脏、肌肉中的表达;d-g)血浆、肝脏、肌肉、脂肪中一碳代谢相关代谢物水平;h-o)Panc02 和 8025 模型 GC 肌中 13C6-葡萄糖 TCA 标记结果。
发现七:人源化模型 + 临床患者数据支持转化价值
最后两步验证把结论推向临床:
临床患者
:有肌少症的癌症患者,肝脏和骨骼肌中 NNMT 等一碳代谢关键酶表达升高; 人源化 SW480 结肠癌模型
:小鼠携带人类结肠癌细胞后,出现典型恶病质,且所有组织中一碳代谢代谢物和基因表达显著上调;13C6-葡萄糖示踪再次显示肌肉 TCA 循环标记增强。
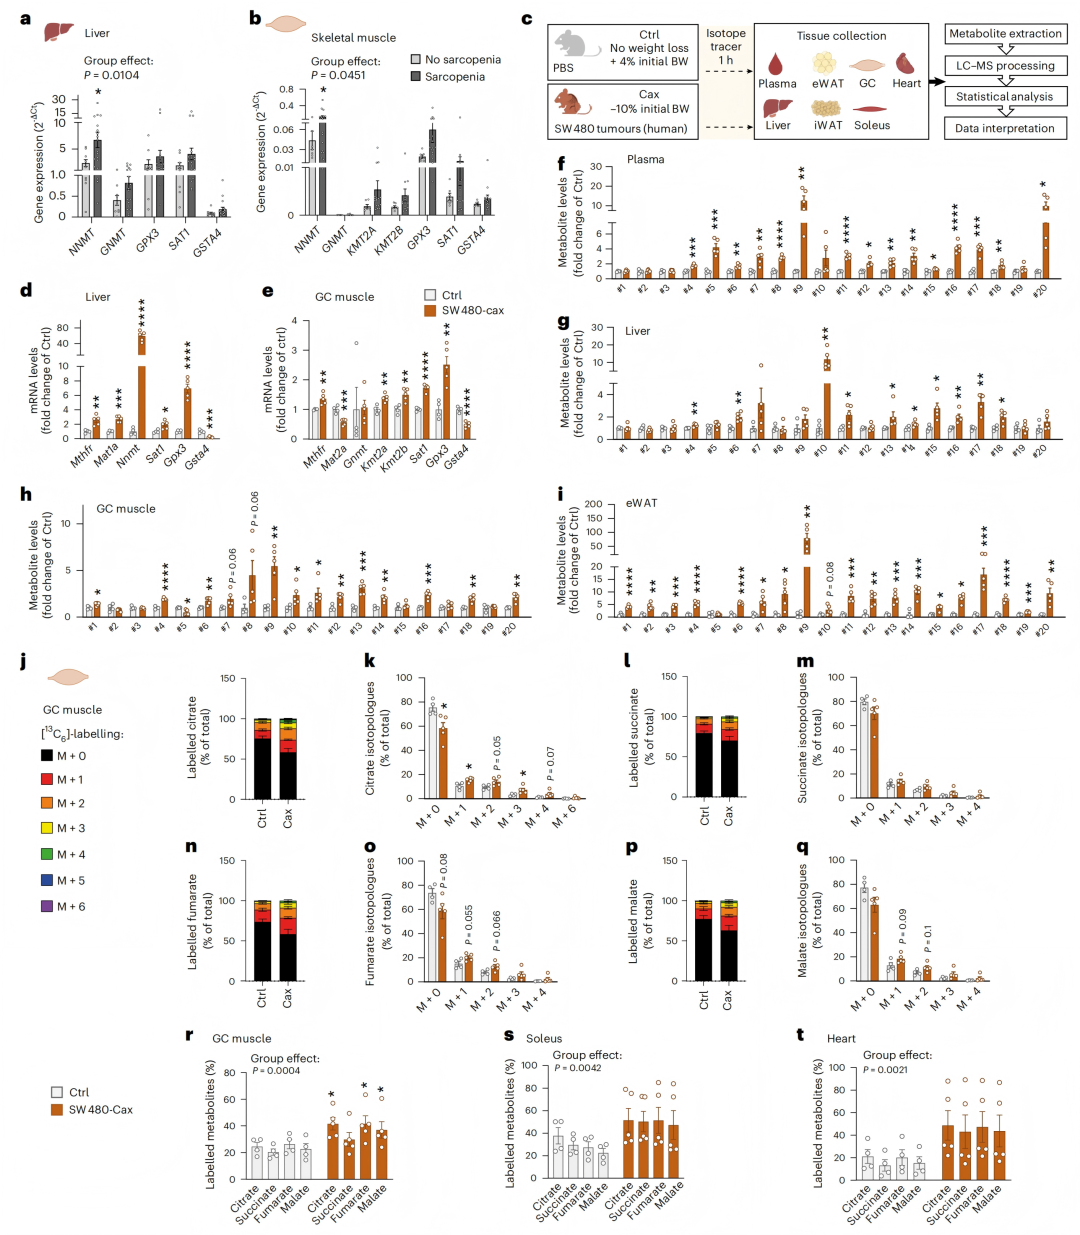
图8说明:a、b)癌症患者肝脏和骨骼肌中一碳代谢相关基因表达(有/无肌少症);c)SW480 人源化模型实验设计;d-i)SW480 模型中一碳代谢基因和代谢物水平;j-t)SW480 模型骨骼肌和心肌中 13C6-葡萄糖 TCA 标记结果。
研究局限与启示
局限:
- 仅使用雄性小鼠; - 各模型的采食状态、喂养条件不完全一致; - 一碳代谢激活是“因”还是“果”仍需更多功能实验。
对我们的启发:
多组织 + 多组学是发现“系统性代谢病”机制的关键
:只看血浆或只看肌肉,会错过跨组织协同。 一碳代谢可能成为干预靶点
:甲硫氨酸、SAM、叶酸、多胺等节点已有药物或饮食干预基础;但也要注意,靶向一碳代谢的化疗药(如甲氨蝶呤)本身可能加重恶病质。 代谢组客户沟通可借鉴
:对于肿瘤/恶病质相关项目,报告里可以重点关注一碳代谢相关代谢物(甘氨酸、丝氨酸、肌氨酸、SAM/SAH、胸苷、谷胱甘肽等)的变化趋势。
一句话总结
这项研究用“多组织代谢组 + 转录组 + 同位素示踪”证明:一碳代谢是癌症恶病质中连接肿瘤-宿主互作、炎症、肌肉萎缩和葡萄糖高代谢的核心通路,并在 6 个小鼠模型和人源/临床样本中得到验证。