
 English
文献解读|Bone Res(20.1):单细胞图谱揭示了人类肩袖撕裂后瘢痕修复的分子动力学
✦ +
+
论文ID
原名:Single cell atlas decodes the molecular dynamics of scar repair after human rotator cuff tear
译名:单细胞图谱揭示了人类肩袖撕裂后瘢痕修复的分子动力学
期刊:Bone Research
影响因子:20.1
发表时间:2026.02.05
DOI号:10.1038/s41413-025-00501-5
背 景
肩袖撕裂(RCT)后肌腱修复的常见结果是瘢痕愈合,这会改变肌腱的结构和力学特性,增加术后功能障碍和再次撕裂的风险。纤维化瘢痕是由炎症、再生障碍和促纤维化信号激活引起的,导致细胞外基质(ECM)堆积紊乱。异质性的病理微环境是肩袖损伤后纤维化瘢痕形成的重要因素。纤维化瘢痕的形成主要由炎症引发。肩袖损伤后,巨噬细胞、中性粒细胞、淋巴细胞、细胞因子、趋化因子和坏死碎片等多种炎症细胞共同激活炎症反应。炎症微环境具有双重作用:一方面,它会损伤组织;另一方面,它又能促进组织修复。现有研究表明,免疫细胞,尤其是巨噬细胞,是转化生长因子-β (TGF-β) 分泌的主要来源,而TGF-β既能促进组织修复,也能促进纤维化。炎症消退期间,巨噬细胞转化为瘢痕相关巨噬细胞(SAM)的促纤维化表型,这些细胞高表达CD9、TREM2、SPP1、COL1A1和其他瘢痕相关基因,从而促进多种纤维化疾病的瘢痕形成。然而,肩袖损伤后炎症成分参与纤维化瘢痕形成的机制仍不清楚。
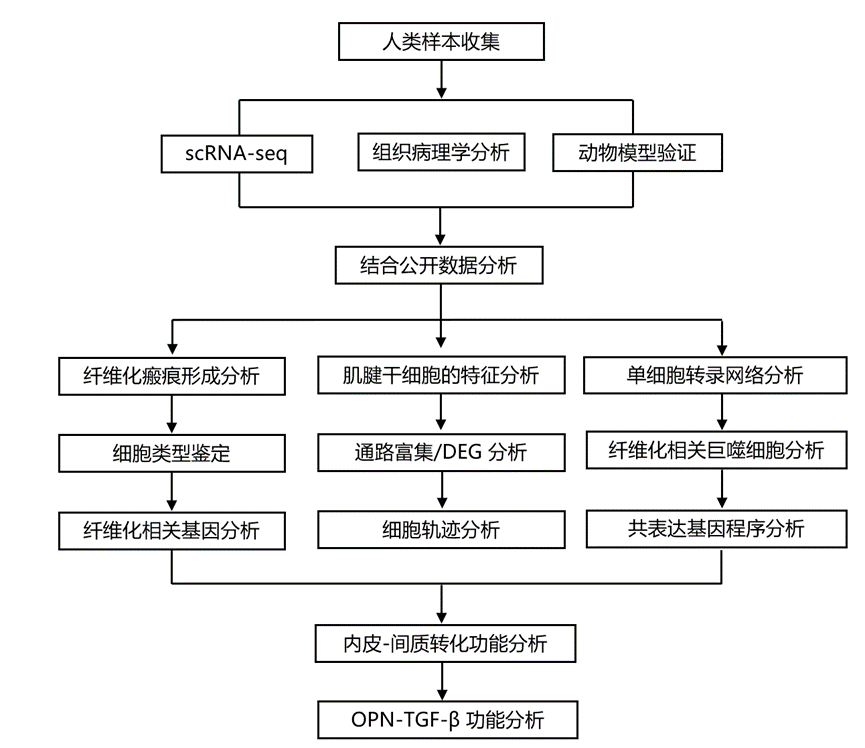
实验设计
结 果
01
人体随机对照试验后纤维化瘢痕形成
为了研究RCT后瘢痕愈合的组织学特征,研究团队收集了10例急性、13例亚急性、15例慢性RCT患者的肌腱组织,以及2例正常半腱肌腱组织作为正常对照。MRI显示RCT不同阶段均有明显的损伤征象(图1a)。对不同阶段的组织进行了HE染色、Masson染色、番红O-固绿染色、苦味酸-天狼星红染色和透射电镜成像(图1b-g)。HE染色、Masson染色和番红O-固绿染色显示,正常肌腱胶原纤维束排列紧密平行,其中夹杂着少量细胞。在RCT急性期,胶原纤维束稀疏且排列紊乱,伴有大量细胞浸润、广泛的新生血管形成(图1b-g)以及胶原体积分数(CVF)显著降低(图1h)。在亚急性期和慢性期,细胞浸润减少,血管逐渐退化,胶原纤维束变得更加致密但排列更加紊乱(图1b-d),胶原纤维分数(CVF)增加但仍低于正常水平(图1h)。Picrosirius红染色显示,正常肌腱主要由I型胶原组成,I型/III型胶原比例约为7。RCT后,III型胶原沉积增加,导致I型/III型胶原比例显著且持续降低,这种降低持续到慢性期(图1i)。纤维角度分析也显示,损伤后胶原纤维束的排列紊乱仍然存在(图1j)。透射电镜(TEM)显示,正常胶原纤维的直径均匀分布在1-2 μm范围内。相比之下,不同阶段的RCT中胶原纤维直径显著减小,峰值约为0.5 μm,且标准差较小(图1k-m)。同样,透射电镜(TEM)也证实了损伤后胶原纤维排列紊乱(图1f-g)。为了研究RCT瘢痕愈合的跨物种特征,他们建立了冈上肌腱断裂的大鼠模型。采用HE染色和Masson染色进行组织学分析显示,大鼠模型中的瘢痕形成过程与人类RCT中观察到的时间进程相似。这些结果表明,RCT修复会导致持续性瘢痕形成,其特征为组织结构紊乱、胶原排列混乱、I型/III型胶原比例失衡以及胶原纤维直径变细。
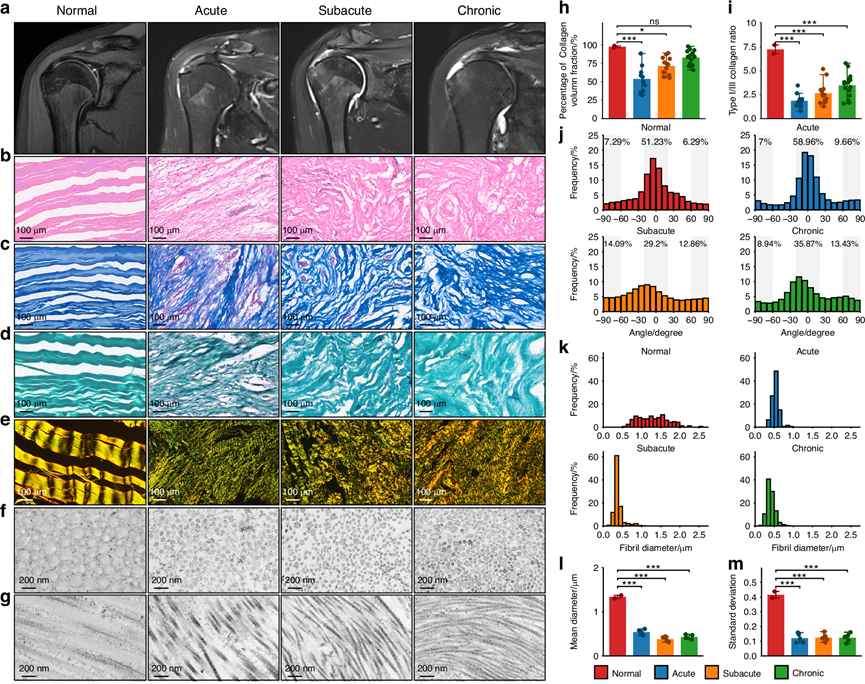
图1. 人类肩袖损伤后的瘢痕形成。
(a)正常及不同阶段(急性、亚急性、慢性)人类肩袖损伤的MRI成像。(b-g) 人类肩袖损伤不同阶段的组织学成像,包括H&E染色、Masson染色、番红O-固绿染色、偏光显微镜下苦味酸-天狼星红染色以及胶原纤维的电镜图像。(h-i) 条形图显示正常肌腱及不同阶段人类肩袖损伤的胶原体积分数和I型/III型胶原比例。(j-k) 正常肌腱及不同阶段人类肩袖损伤的胶原纤维角度和胶原纤维直径分布。(l-m) 为柱状图,显示正常肌腱和不同阶段人类 RCT。
02
单细胞图谱和RCT纤维化微环境特征
为了研究RCT后纤维化瘢痕愈合的微环境特征,他们对成人RCT急性期、亚急性期和慢性期肌腱残端进行了单细胞转录组分析(scRNA-seq)(图2a),共获得了87730个高质量细胞,并根据经典标记基因将其鉴定为八种主要细胞类型,包括腱细胞、软骨细胞、平滑肌细胞(SMC)、内皮细胞(endothelia)、增殖细胞(prolif)、髓系细胞(myoid)、B细胞(BC)和T细胞(TC)(图2b-c)。腱细胞是各阶段的主要细胞类型。髓系细胞比例在亚急性期和慢性期增加,而内皮细胞和SMC的比例随着RCT病程的延长而逐渐减少(图2d)。
随后,重点研究了RCT中不同细胞类型的纤维化瘢痕特征,筛选出8个纤维化相关基因(FRG),包括COL1A1、COL1A2、COL3A1、COL5A2、FN1、DCN、LUM和POSTN,它们编码与纤维化密切相关的ECM蛋白。在所有阶段,FRGs在腱细胞、软骨细胞和SMC中均高表达。重要的是,FRGs在其他细胞类型(包括髓系细胞、内皮细胞和TC)中的表达也显著增加,尤其是在亚急性期和慢性期(图2e),表明它们可能参与瘢痕愈合。其中,POSTN编码骨膜蛋白,该蛋白在多种疾病中驱动纤维化进展,在大多数细胞类型中仅在慢性期表现出上调(图2e)。始终如一,ECM相关通路在腱细胞、软骨细胞和SMC中显著富集(图2f)。这些结果共同表明,RCT后的纤维化愈合不仅涉及结构细胞,还涉及免疫细胞和血管细胞。
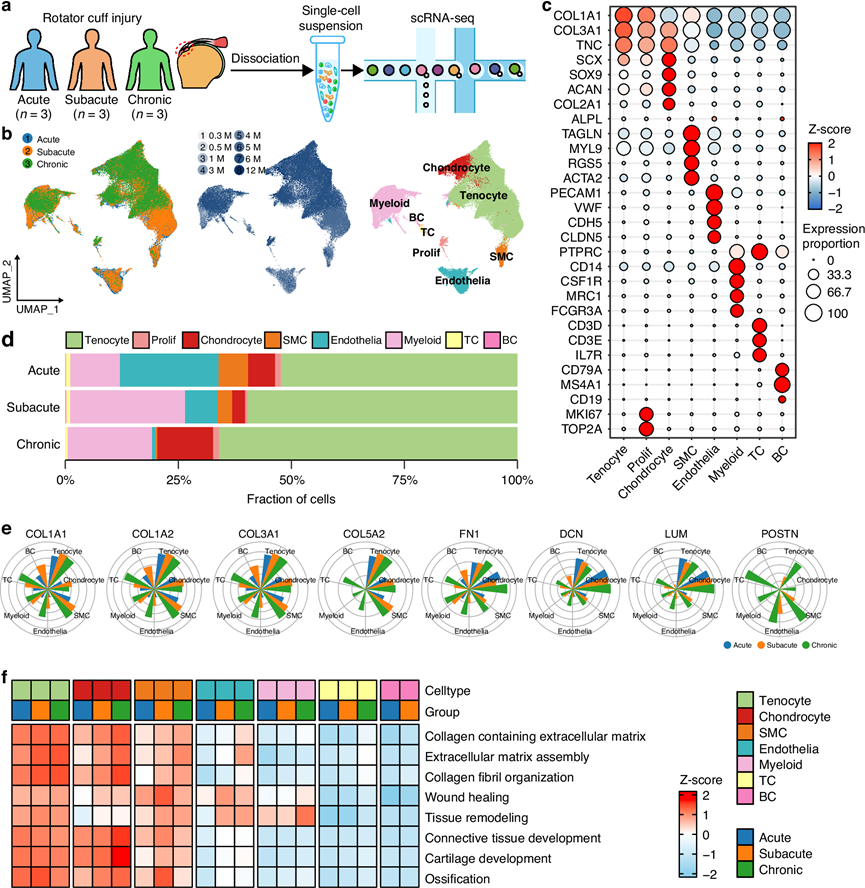
图2. RCT后不同阶段和细胞类型的纤维化瘢痕特征。
(a) 单细胞RNA测序(scRNA-seq)工作流程示意图。(b) 来自9个RCT样本的87730个细胞的UMAP嵌入图,并按疾病阶段、损伤持续时间和细胞类型进行注释。(c) 点状热图显示每种主要细胞类型的常见标记基因表达。(d) 不同RCT阶段主要细胞类型的比例。(e)每种细胞类型在不同RCT阶段的纤维相关基因(FRG)表达。(f) 每种细胞类型在不同RCT阶段的细胞外基质(ECM)分泌和纤维化信号通路活性。
03
肌腱干细胞参与RCT后的纤维化瘢痕形成
他们对腱细胞进行了重新聚类,并基于通路富集和细胞干性评分识别出七个亚聚类。其中四个亚聚类代表了常见的发育状态:腱干细胞 (TSC)、腱细胞祖细胞 (Teno_prog)、腱母细胞和成熟腱细胞 (Teno_mature),其干性从 TSC 到 Teno_mature 逐渐降低,成熟度逐渐增加(图3a-c)。此外,还鉴定出三个功能特化的亚聚类:干扰素相关腱细胞 (Teno_IFN)、抗原呈递相关腱细胞 (Teno_antig) 和反应相关腱细胞(Teno_respo,富集于“对细胞外刺激的反应”相关通路)(图3a)。每个亚聚类中差异表达上调最显著的基因如图3d所示。随着 RCT 的进展,TSC 的比例保持不变,而 Teno_mature 的比例并未如预期般增加。相反,在慢性期,腱母细胞的比例增加(图3e)。免疫荧光进一步证实了在亚急性期和慢性期腱干/祖细胞的大量存在(图3f-g)。这些结果表明,在RCT后,TSC和Teno_prog并未逐渐分化为成熟的腱细胞。
功能分析显示,Teno_IFN、Teno_respo和Teno_antig中炎症相关通路显著激活(图3h),表明它们在炎症反应中发挥作用。相反,TSC和Teno_prog中ECM相关通路和FRGs显著上调(图3h-j),提示它们可能在纤维化愈合中发挥作用。值得注意的是,POSTN主要在TSC和Teno_prog中表达,并随着RCT的进展呈现阶段依赖性上调(图3i-k)。免疫荧光进一步证实,在亚急性期和慢性期均有明显的骨膜蛋白沉积(图3l-m)。
综上所述,这些结果表明,具有较高干性的腱细胞亚群,特别是TSC和Teno_prog,在亚急性期和慢性期持续存在,高表达纤维化相关的细胞外基质蛋白(如骨膜蛋白),并参与RCT术后瘢痕愈合过程。
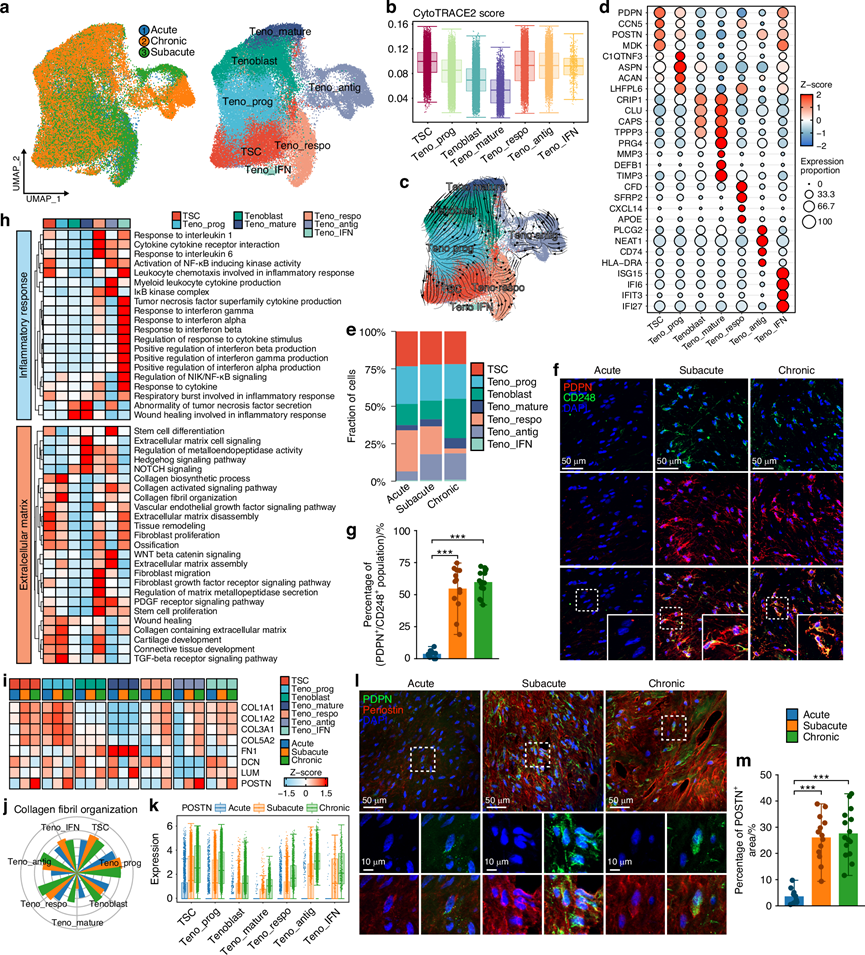
图3. 肌腱干细胞和腱细胞祖细胞是RCT后ECM的主要来源。
(a)按阶段和亚聚类注释的肌腱细胞UMAP嵌入图。(b) 不同RCT阶段腱细胞亚聚类的比例。(c) 显示每个亚聚类中显著上调基因的点状热图。(d) 腱细胞亚聚类中炎症和ECM相关通路活性的热图。(e) 腱细胞亚聚类中CytoTRACE2评分的小提琴图。(f) 腱细胞亚聚类的稳态RNA速度。(g) 不同阶段标记肌腱干细胞的干细胞相关基因(PDPN和CD248)的免疫荧光染色。(h) RCT中PDPN+/CD248+细胞比例的测量。(i) 腱细胞亚聚类中FRG表达的热图。(j) 各亚聚类不同阶段“胶原纤维组装”通路活性。(k) 箱线图显示各亚聚类不同阶段 POSTN 表达。(l)免疫荧光标记 RCT 中 PDPN 和骨膜蛋白的表达。(m) RCT 中POSTN +面积的测量。
04
衰老会损害腱细胞的组织重塑能力
衰老在促进纤维化中起着至关重要的作用。为了探究腱细胞在RCT不同阶段分化过程中的衰老情况,他们利用SenCID和基于Monocle的轨迹分析进行了衰老评估。他们识别出两条分化轨迹(图4a)。轨迹1起源于TSC,依次经历Teno_IFN、Teno_respo和Teno_antig,始终保持较高的CytoTRACE评分和较低的衰老评分。轨迹2代表腱细胞的成熟过程,从TSC发展到Teno_prog,再到Tenoblast,最终到teno_mature,衰老评分显著增加,其中Teno_mature的衰老评分最高(图4a-c)。此外,随着RCT的进行,所有腱细胞亚群的衰老评分均显著升高(图4c),表明腱细胞在RCT后经历了进行性衰老。SA-β-Gal染色进一步证实了这一发现(图4d)。富集分析显示,在慢性期,腱细胞显著富集于与细胞呼吸、缺氧、细胞凋亡和P53信号通路相关的通路(图4e),这可能促进腱细胞的衰老。
接下来,他们探讨了腱细胞衰老是否会影响瘢痕组织的重塑,这是纤维化消退的关键过程,发现腱细胞衰老评分与“细胞外基质解体”和“组织重塑”通路呈负相关(图4f)。相反,GSEA分析显示,衰老腱细胞显著上调了与细胞外基质沉积相关的通路“含胶原蛋白的细胞外基质”(图4g)。此外,在衰老腱细胞中,基质金属蛋白酶-2 (MMP2)(一种细胞外基质降解的关键酶)的表达下调,而POSTN的表达上调(图4h)。这些研究结果表明,衰老的腱细胞表现出组织重塑能力受损和 ECM 沉积增强,从而导致瘢痕无法进行适当的重塑,并促进 RCT 后的纤维化进展。
为了鉴定与腱细胞衰老相关的关键转录因子,他们进行了单细胞转录网络分析,鉴定了腱细胞亚聚类特异性调控子。然后,分析了调控子活性与干性评分以及衰老评分之间的相关性。通过设定相关系数阈值为0.2,鉴定了14个与干性相关的调控子,例如STAT2(+)、KLF10(+)和MAF(+),以及5个与衰老相关的调控子:DBP(+)、FOXO1(+)、KLF3(+)、HLF(+)和RARG(+)(图4i-j)。衰老相关调控子的靶向网络富集于与钙黏蛋白结合、胶质细胞生成、间质转化和蛋白激酶活性相关的通路(图4k),表明这些通路参与了腱细胞衰老过程。免疫荧光进一步证实,在RCT进展过程中,腱细胞中DBP和FOXO1的激活增强(图4l-m)。总之,衰老相关调控子(如DBP和FOXO1)可能在RCT后驱动腱细胞衰老。
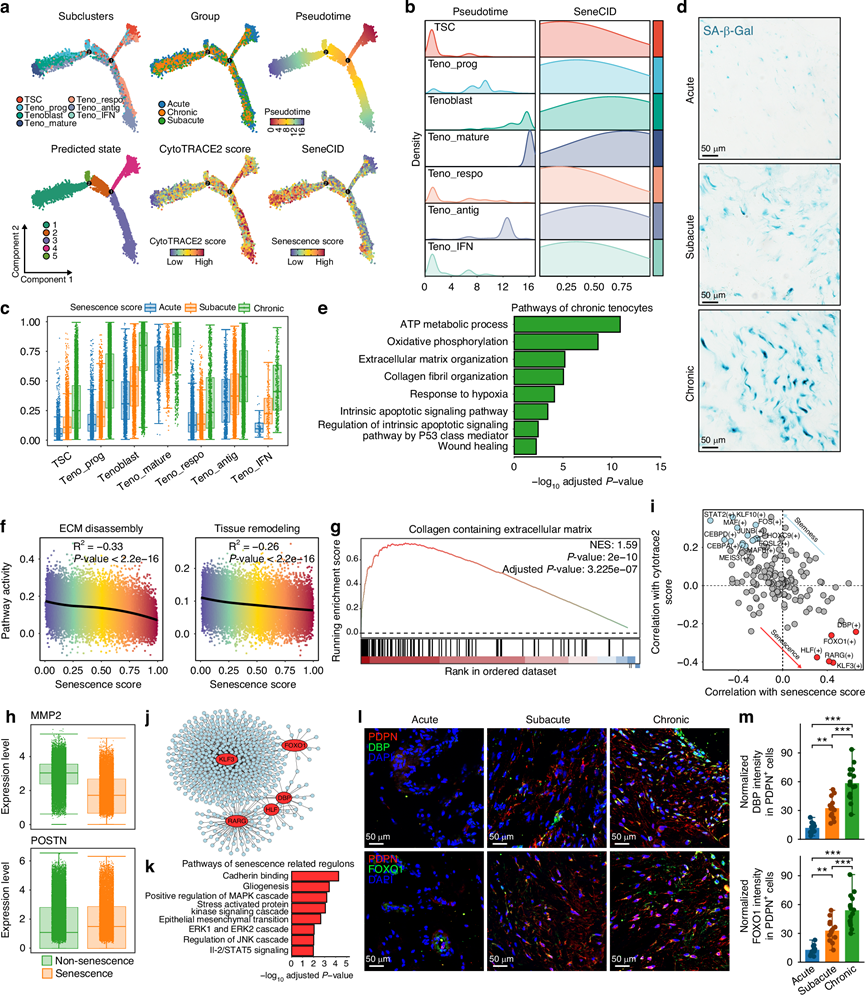
图4. RCT后衰老腱细胞的特征和关键调控因子。
(a) 腱细胞发育轨迹,以伪时间、预测状态、RCT阶段、亚群、CytoTRACE2和衰老评分进行注释。(b) 脊线图显示腱细胞亚群的伪时间和衰老评分。(c) 箱线图显示每个腱细胞亚群不同阶段的衰老评分。(d) 不同阶段的SA-β-Gal染色。(e) 慢性期腱细胞中富集的通路。(f) 腱细胞中衰老评分与“细胞外基质解体”以及“组织重塑”通路之间的相关性。(g) 衰老和非衰老腱细胞中“含胶原蛋白的细胞外基质”通路的GSEA图。(h) 箱线图显示衰老和非衰老腱细胞中MMP2和POSTN的表达。(i) 调控子与CytoTRACE2以及衰老评分之间的相关性分析。(j) 衰老驱动调控子的调控网络。(k) 衰老驱动调控子中富集的通路。(l) 免疫荧光显示RCT肌腱干细胞中DBP和FOXO1的表达。(m) PDPN+细胞中DBP和FOXO1强度的测量。
05
参与RCT后纤维化瘢痕形成的纤维化相关巨噬细胞
由于巨噬细胞持续浸润,他们对髓系细胞聚类进行了重新聚类,并基于亚聚类特异性差异表达基因(DEG)和功能富集分析,鉴定出七个巨噬细胞亚聚类和一个肥大细胞聚类(图5a-b)。他们将这些巨噬细胞亚聚类定义为炎症相关(inflam-Macro)、抗原呈递相关(antig-Macro)、脂质代谢相关(lipid-Macro)、干扰素相关(IFN-Macro)、伤口愈合相关(wound-Macro)、纤维化相关(fibro-Macro)和增殖性(prolif-Macro)(图5a)。Inflam-Macro和antig-Macro主要存在于急性期和亚急性期,而fibro-Macro和wound-Macro的比例在亚急性期和慢性期增加(图5c)。通路活性分析显示,在急性期,炎症相关通路在炎症巨噬细胞(inflam-Macro)和抗免疫球蛋白巨噬细胞(antig-Macro)中均上调,而干扰素相关通路在干扰素巨噬细胞(IFN-Macro)中始终保持高度激活状态(图5d)。为了探究巨噬细胞功能的异质性,对不同阶段的差异表达基因和激活通路进行了分析。急性期巨噬细胞表现出急性炎症相关通路的激活,包括IL-1、LPS和氧化应激通路;而亚急性期则激活了适应性免疫反应和MHC通路,突显了巨噬细胞在急性期和亚急性期不同的免疫反应。值得注意的是,慢性期巨噬细胞表现出ECM)相关通路的显著激活和纤维蛋白原(FRG)表达的上调,表明其具有促纤维化功能。
值得注意的是,他们发现纤维巨噬细胞亚群主要表现出ECM相关通路的上调(图5d-e)。此外,纤维巨噬细胞高表达纤维相关基因(FRG),例如COL1A1、COL3A1、DCN和LUM(图5f)。荧光原位杂交(FISH)和免疫荧光(IF)共染色进一步证实了亚急性期和慢性期巨噬细胞中COL1A1的高表达(图5g-h),表明纤维巨噬细胞表型直接表达纤维相关基因。轨迹分析揭示了巨噬细胞分化轨迹,从增殖型巨噬细胞(prolif-Macro)到炎症型巨噬细胞(inflam-Macro)再到伤口型巨噬细胞(wound-Macro),最终分化为纤维型巨噬细胞(fibro-Macro),表明纤维型巨噬细胞与其他巨噬细胞亚群分化而来,代表了巨噬细胞的终末状态(图5i-j)。此外,COL1A1和COL3A1的表达随时间推移逐渐增加(图5k)。这些结果提示,纤维型巨噬细胞作为巨噬细胞分化的终末状态,可直接分泌ECM成分,从而促进根治性膀胱移植术后瘢痕的愈合。
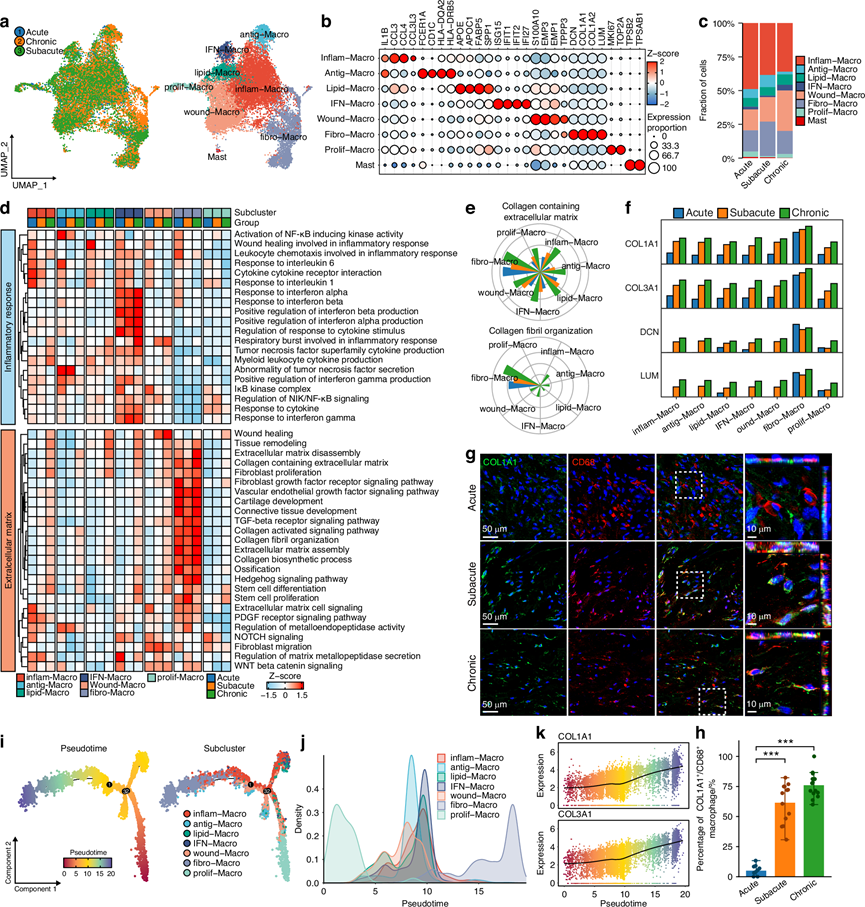
图5. RCT后纤维巨噬细胞表型的特征。
(a)按阶段和亚聚类注释的巨噬细胞UMAP嵌入图。(b) 点状热图显示每个亚聚类中显著上调的基因。(c) 不同RCT阶段巨噬细胞亚聚类的比例。(d) 不同阶段巨噬细胞亚聚类中炎症和ECM相关通路活性的热图。(e) 每个亚聚类不同阶段中“含胶原的细胞外基质”和“胶原纤维组织”通路活性。(f) 条形图显示不同阶段巨噬细胞亚聚类中COL1A1、COL1A2、DCN和LUM的表达。(g) FISH和免疫荧光共染色显示CD68 +巨噬细胞中COL1A1的表达。(h) RCT中COL1A1+ /CD68+巨噬细胞比例的测量。(i) 巨噬细胞轨迹,以拟时序和亚聚类进行注释。(j) 密度图显示巨噬细胞亚聚类的拟时序分布。(k) 巨噬细胞中 COL1A1 和 COL3A1 的表达以及拟时序的变化。
06
SOX9驱动巨噬细胞向纤维巨噬细胞表型转化
为了进一步鉴定巨噬细胞的基因共表达程序,他们进行了非负矩阵分解(NMF),发现了44个共表达基因程序,并通过层次聚类将其归纳为5个具有相似基因表达模式的共同元程序(图6a)。富集分析表明,这5个元程序对应于巨噬细胞的不同功能:抗原呈递、增殖、溶酶体活性、ECM组织和小GTP酶信号传导(图6a)。元程序1由人类白细胞抗原(HLA)基因组成,代表巨噬细胞的免疫功能,并在抗原巨噬细胞(antig-Macro)中显著上调;而元程序4与ECM组织相关,在纤维化巨噬细胞(fibro-Macro)中高表达(图6a-b),表明其在肾移植瘢痕愈合中发挥关键作用。进一步确定了元程序 4 的枢纽基因相互作用网络,突出了 COL1A1、COL3A1、COL5A2、THBS2、DCN、FN1 和其他程序基因在 fibro-Macro 中的关键作用(图6c)。
随后,他们试图鉴定驱动巨噬细胞向纤维化表型转化的关键调控因子。利用SCENIC数据,他们将调控子聚类为五个跨巨噬细胞表型的共调控模块(图6d)。模块1(包括CEBPD(+)、FOS(+)、JUNB(+)、ATF3(+)等)在炎症型巨噬细胞(inflam-Macro)和抗免疫球蛋白型巨噬细胞(antig-Macro)中显著激活,反映了它们调控巨噬细胞免疫反应的功能。相反,模块3[包括SOX9(+)、BARX1(+)、LEF1(+)、KLF9(+)等]主要在fibro-Macro中激活,表明其在调控纤维化中发挥关键作用(图6d)。调控子与基因共表达元程序之间的相关性分析进一步鉴定出炎症相关调控子和纤维化相关调控子,它们分别主要富集于调控子模块1和模块3(图6e)。这些炎症相关和纤维化相关调控子可能驱动了RCT后巨噬细胞的两项关键功能。在模块3的调控子中,SOX9作为一种关键转录因子脱颖而出,此前已有报道其在多种疾病中促进纤维化。在fibro-Macro中,SOX9(+)调控子活性上调(图6f),并与纤维化相关基因元程序4呈正相关(图6g)。免疫荧光证实了RCT后巨噬细胞中SOX9的核定位(图6h)。为了验证SOX9在巨噬细胞中的调控作用,在大鼠骨髓来源的巨噬细胞(BMDM)中过表达SOX9,并通过免疫荧光和Western blot实验证实了这一点(图6i-k)。SOX9过表达的BMDM表现出α-SMA[巨噬细胞-肌成纤维细胞转化(MMT)的关键标志物]表达增加,以及纤维化相关ECM蛋白(I型胶原、III型胶原和骨膜蛋白)的表达增加(图6i-k)。综上所述,这些结果表明SOX9作为关键调控因子,驱动巨噬细胞向纤维巨噬细胞表型转化并促进ECM表达。
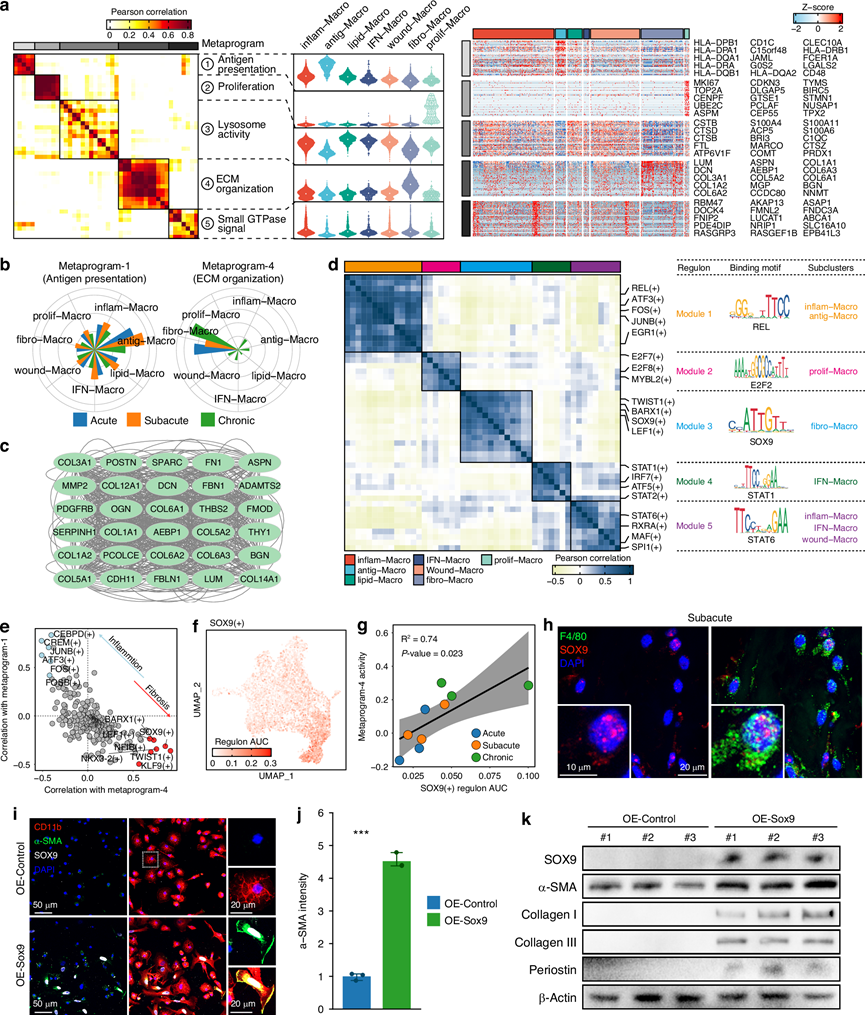
图6. 纤维巨噬细胞表型的常见元程序和关键调控因子。
(a) 44个基因程序的相关性热图,显示5个元程序的聚类(左);小提琴图显示巨噬细胞亚群中元程序的活性(中);表达热图显示每个元程序中主要基因的共表达模式(右)。(b) 条形图显示不同阶段巨噬细胞亚群中元程序1和4的活性。(c) 元程序4枢纽基因的PPI网络。(d) 50个调控子的相关性热图,显示5个共调控模块的聚类。(e) 巨噬细胞中每个调控子与元程序1和4之间的相关性。(f) 巨噬细胞的UMAP嵌入图,显示SOX9(+)调控子的AUC。(g) 点图显示SOX9(+)调控子的AUC与元程序4表达之间的相关性。(h) 免疫荧光显示RCT后巨噬细胞中SOX9的激活。(i) 免疫荧光显示大鼠骨髓来源巨噬细胞 (BMDM) 中 SOX9 和 α-SMA 的表达。(j) 测量大鼠 BMDM 中 α-SMA 的平均强度。(k) Western blot 分析 OE-Control 组和 OE-SOX9 组大鼠 BMDM 中 α-SMA、I 型胶原、III 型胶原和骨膜蛋白的表达。
07
内皮-间质转化参与RCT后纤维化瘢痕的形成
他们进行了重新聚类,鉴定出五个血管内皮细胞亚聚类和一个淋巴管内皮细胞聚类(lymph-Endo)。基于亚聚类特异性DEG和功能富集分析(图7a-b),内皮细胞亚聚类注释为炎症相关内皮细胞(inflam-Endo)、抗原呈递相关内皮细胞(antig-Endo)、fibro-Endo、动脉内皮细胞(arter-Endo)和顶端细胞。inflam-Endo和antig-Endo亚聚类表现出炎症功能,而fibro-Endo亚聚类则表现出FRGs的高表达和ECM相关通路的显著上调(图7b-c)。跨不同阶段的功能富集分析表明,急性期血管内皮细胞表现出增强的血管生成和能量代谢。在亚急性期, TGF-β 信号通路激活,而在慢性期,ECM 相关通路上调(图7d)。
值得注意的是,随着RCT的进展,内皮细胞的数量和内皮细胞亚群的比例均显著下降(图7e-f),免疫荧光证实了血管退化(图7j-k)。为了探究其潜在机制,他们重点研究了退化过程中的内皮细胞。在亚急性期,内皮细胞表现出间质转化和TGF-β信号通路的显著富集(图7g),同时TGF-β信号通路的关键介质SMAD2/3/5的表达也升高(图7h)。免疫荧光进一步证实了亚急性期内皮细胞中SMAD2/3的显著上调(图7i)。鉴于TGF-β信号通路是内皮-间质转化(EndoMT)的公认驱动因素,他们检测了α-SMA(一种典型的EndoMT标志物)的表达,并观察到其在亚急性期内皮细胞中显著上调(图7j-l)。这些结果表明,EndoMT促进了RCT亚急性期的血管退化。此外,在大鼠RCT模型中,他们也观察到不同阶段内皮细胞中血管退化和α-SMA的显著表达。
随后,他们进行了轨迹分析,揭示了从顶端细胞到fibro-Endo的分化轨迹(图7m),并伴随着COL1A1和COL3A1表达的逐渐增加(图7n)。重要的是,fibro-Endo位于内皮细胞亚群的末端,并表现出高活性的TGF-β信号通路(图7o)。这些特征表明,纤维内皮细胞代表了内皮间质转化(EndoMT)的过渡状态,具有显著的促纤维化特征。通过获得间充质细胞特征并高表达纤维化相关的ECM基因,fibro-Endo不仅标志着经历EndoMT的内皮细胞的命运,而且也成为肾移植术后纤维化瘢痕形成的重要细胞贡献者。
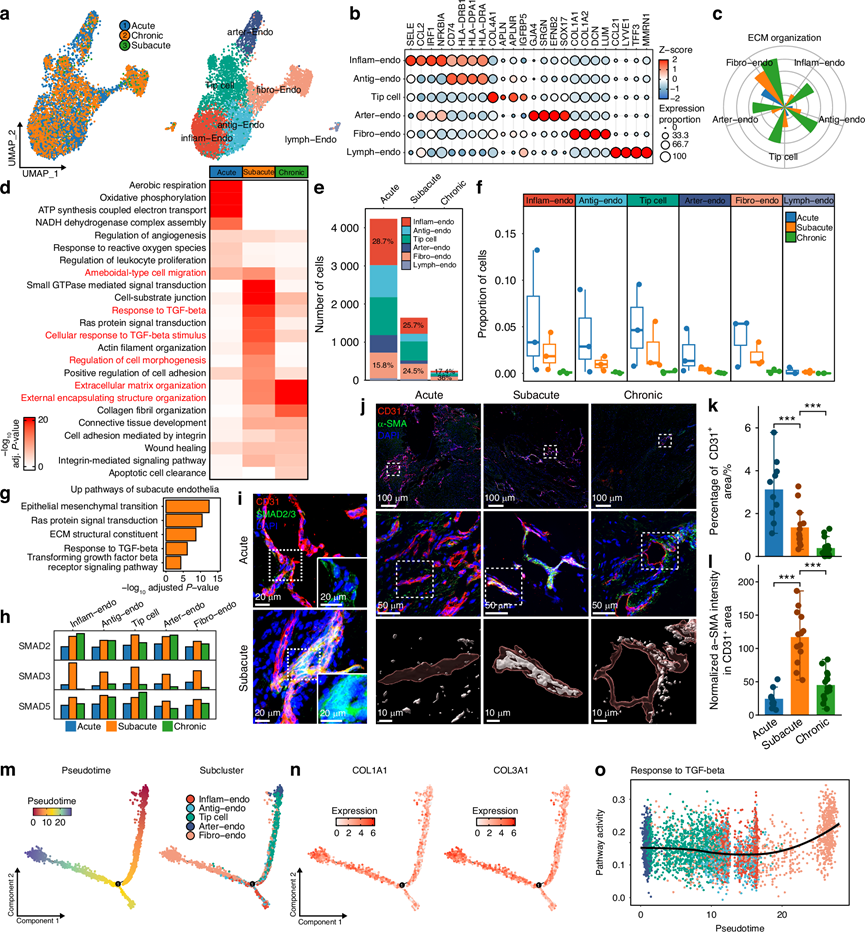
图7. 内皮间质转化(EndoMT)的特征和RCT后的演变轨迹。
(a) 按阶段和亚聚类注释的内皮细胞UMAP嵌入图。(b) 点状热图显示每个亚聚类中显著上调的基因。(c) 各亚聚类不同阶段“细胞外基质组织”通路活性。(d) 热图显示不同阶段富集通路的P值。(e) 条形图显示不同阶段内皮细胞的数量。(f) 箱线图显示不同阶段内皮细胞亚聚类的比例。(g) 条形图显示亚急性期内皮细胞上调的通路。(h) 条形图显示不同阶段内皮细胞亚聚类中SMAD2、SMAD3和SMAD5的表达。(i) 免疫荧光显示人RCT中SMAD2/3和CD31的表达。(j) 免疫荧光显示人RCT中α-SMA和CD31的表达。(k-l) 测量人 RCT 中CD31+面积和 CD31+区域内 α-SMA 强度。(m) 根据伪时间和亚聚类标注的内皮细胞轨迹。(n) 根据 COL1A1 和 COL3A1 表达着色的内皮细胞轨迹。(o) “对 TGF-β 的反应”通路在内皮细胞亚聚类轨迹上的活性。
08
OPN和TGF-β信号通路促进RCT后纤维化瘢痕形成
为了探究RCT微环境中的促纤维化信号通路,首先对不同亚群进行了细胞间通讯分析,结果显示不同亚群之间存在广泛的相互作用。鉴于巨噬细胞和腱细胞是RCT中的主要细胞类型,重点研究了巨噬细胞与腱细胞的相互作用。在检测到的信号中,SPP1(编码OPN蛋白)与其受体ITGAV、CD44、ITGA5、ITGB1和ITGB5之间的相互作用最为显著。SPP1在慢性期主要在巨噬细胞亚群中表达(图8a),而其受体则广泛表达于腱细胞亚群中(图8b)。免疫荧光结果证实了RCT慢性期巨噬细胞中OPN的表达以及TSC中ITGAV的表达(图8c)。此外,巨噬细胞中 SPP1 的表达模式与 TSC 中 POSTN 的表达模式以及 Teno_prog 的表达模式密切正相关(图8d),表明 OPN 可能促进腱细胞亚聚类分泌 ECM。
另一方面,他们总结了六条已知在多种疾病中调控组织愈合和纤维化的经典信号通路,包括TGF-β、骨形态发生蛋白(BMP)、成纤维细胞生长因子(FGF)、血小板衍生生长因子(PDGF)、表皮生长因子(EGF)和血管内皮生长因子(VEGF)信号通路。首先评估了各亚群对这些通路的反应活性。主要响应细胞包括腱细胞、平滑肌细胞(SMC)和内皮细胞亚群。具体而言,TSC、Teno_prog、Teno_respo、remod-SMC、fibro-SMC、fibro-Macro和fibro-Endo对这些信号通路表现出显著的反应比例,反映了RCT微环境中广泛的促纤维化相互作用。接下来,研究了这些信号通路的关键调控配体的来源。腱细胞是大多数此类因子的主要来源,例如TGFβ、BMP、PDGFA和VEGF家族成员,以及结缔组织生长因子(CTGF),后者是一种强效的促纤维化介质,可激活TGF-β和BMP信号通路。巨噬细胞也对TGFβ、PDGF和VEGF的产生有显著贡献。此外,与低反应性细胞相比,对TGF-β信号通路高反应性的细胞表现出纤维化相关基因(FRG)表达显著增加,且ECM相关通路活性升高(图8e-f)。对BMP和VEGF信号通路的反应也增强了FRG的表达,而FGF、PDGF和EGF信号通路对除SMC以外的大多数亚群中FRG表达的影响相对较小。
为了研究骨桥蛋白(OPN)和转化生长因子-β(TGF-β)信号通路在体内的促纤维化作用,他们使用OPN中和抗体(OPNn)阻断OPN活性,并使用TGF-β受体激酶抑制剂SB-431542(TGFβRi)抑制TGF-β受体信号通路。首先,用OPNn、TGFβRi或二者联合预处理大鼠原代腱细胞1小时,随后给予OPN和TGF-β1。OPNn和TGFβRi均显著降低了I型胶原、III型胶原和骨膜蛋白的表达,其中联合处理对ECM蛋白水平的降低最为显著(图8g-h),证实了OPNn和TGFβi在体外的有效性。随后,他们对大鼠RCT模型进行了关节内注射OPNn和/或TGFβRi。考虑到OPN和TGF-β信号通路的激活始于亚急性期,因此在损伤后10天开始注射(图8i)。HE染色和Masson染色显示,与未治疗组的致密瘢痕相比,OPNn或TGFβRi治疗组的瘢痕组织较为疏松(图8j)。免疫荧光进一步表明,OPNn或TGFβRi治疗组的胶原蛋白III和骨膜蛋白表达显著降低,其中联合治疗组的表达最低(图8k-l)。这些结果证实了OPN和TGF-β信号通路在RCT后发挥促纤维化作用,并强调了靶向这些通路作为抗纤维化策略的潜力。
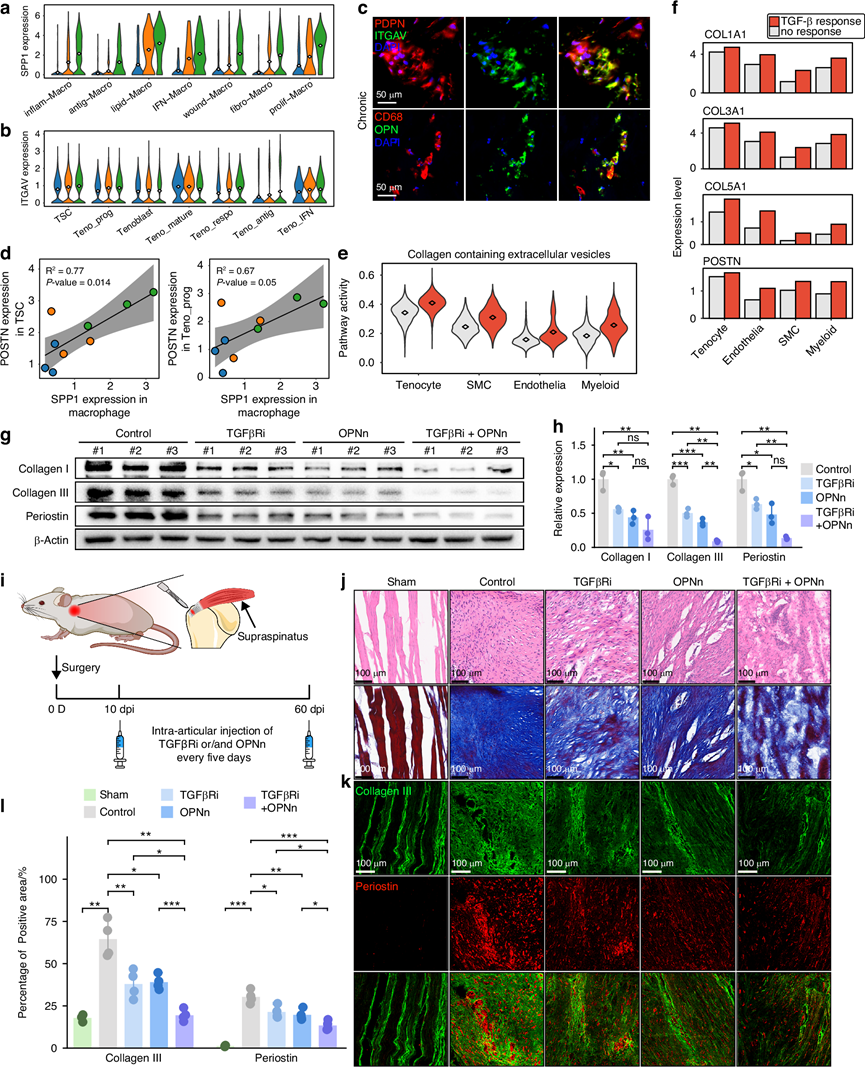
图8. OPN 和 TGF-β 信号通路诱导人 RCT 后形成纤维化瘢痕。
(a)小提琴图显示巨噬细胞亚群中 SPP1 的表达。(b)小提琴图显示腱细胞亚群中 ITGAV 的表达。(c) 慢性期 RCT 样本的免疫荧光显示巨噬细胞中 OPN 的表达和腱干细胞中 ITGAV 的表达。(d) 巨噬细胞中 SPP1的表达与 TSC 和 Teno_prog 中 POSTN 的表达之间的相关性分析。(e) 小提琴图显示 TGF-β 反应细胞和无反应细胞中“含胶原蛋白的细胞外基质”通路活性。(f) 条形图显示 TGF-β 反应细胞和无反应细胞中 FRG 的表达。(g-h) 用OPN/TGF-β 处理的原代大鼠腱细胞中,OPNn 和/或 TGFβRi 组胶原蛋白 I、胶原蛋白 III 和骨膜蛋白表达分析。(i) 大鼠冈上肌腱断裂模型示意图及关节内注射OPNn和TGFβRi。(j) 大鼠RCT模型不同治疗组的H&E染色和Masson染色组织学图像(n = 4)。(k) 大鼠RCT模型不同治疗组的胶原蛋白III和骨膜蛋白表达的免疫荧光标记。(l)大鼠RCT模型不同治疗组胶原蛋白III阳性和骨膜蛋白阳性区域的测量。
+ + + + + + + + + + +
结 论
本研究分析了RCT瘢痕的组织学特征,其主要表现为肌腱结构破坏、胶原纤维排列紊乱以及I型/III型胶原比例和纤维直径失衡。利用RCT患者肌腱残端的scRNA-seq技术,解析了纤维化瘢痕微环境的细胞和分子图谱,鉴定并验证了参与瘢痕形成的异质性促纤维化亚群,包括肌腱干细胞、衰老腱细胞、SOX9驱动的促纤维化巨噬细胞以及正在经历EndoMT的促纤维化内皮细胞。此外,发现骨桥蛋白和TGF-β信号通路是ECM沉积的关键驱动因素,阻断这些通路可改善RCT术后的纤维化瘢痕形成。
+ + + + +