
 English
文献解读|Science(47.3)时空多组学揭示转移定植过程中肿瘤生态系统的动态变化
✦ +
+
论文ID
原名:Spatiotemporal multiomics uncover tumor ecosystem dynamics during metastatic colonization
译名:时空多组学揭示转移定植过程中肿瘤生态系统的动态变化
期刊:Science
影响因子:47.3
发表时间:2026.07.30
DOI号:10.1126/science.adz7928
背 景
转移性定植不仅受癌细胞自身信号传导调控,还受与原发肿瘤截然不同的转移微环境调控。单细胞转录组分析(scRNA-seq)和空间转录组分析(ST)通过识别介导转移灶内异质性并驱动免疫逃逸的细胞群,为人类转移提供了重要的见解。在动物模型中,一些近期研究应用scRNA-seq对癌症转移的多个时间点进行了分析。然而,这些研究受限于缺乏空间背景信息和相对较低的时间分辨率(通常仅包含两到三个连续时间点)。因此,在转移播散的多步骤过程中,播散性肿瘤细胞(DTC)和微环境细胞之间复杂的分子动力学和细胞间通讯机制仍有待阐明。
实验设计
结 果
01
多模态分析揭示转移性肿瘤生长的时空动态
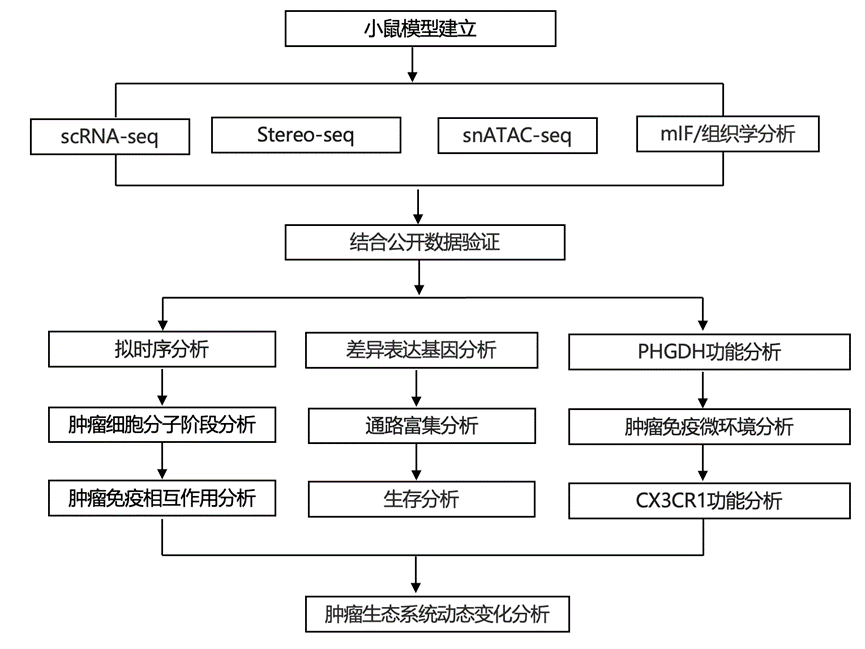
为了在免疫功能正常的鼠中建立稳定的肺转移模型,研究团队将mCherry标记的Hepa 1-6小鼠肝癌细胞(雌性供体)静脉注射到雄性C57BL/6J小鼠体内(图1A)。在注射后九个时间点采集全肺组织,以记录从初始播散到晚期转移的进展过程:T1(0.25小时)、T2(1小时)、T3(4小时)、T4(12小时)、T5(24小时)、T6(2天)、T7(8天)、T8(21天)和T9(35天)(图1A)。在每个时间点,对右肺最大横截面进行10 μm厚的冷冻切片,以捕获大致单层细胞,用于空间增强分辨率组学测序(Stereo-seq)。剩余的右肺组织用于免疫组织化学(IHC)和多重免疫荧光(mIF)分析,而左肺组织则进行scRNA-seq和单细胞核转座酶可及染色质测序(snATAC-seq)进行分析,无需细胞分选(图1A)。此外,从3例肝细胞癌(HCC)肺转移患者中获取样本用于Stereo-seq,从5例HCC肺转移患者中获取样本用于scRNA-seq和IHC分析(图1A)。
为了阐明肿瘤细胞的内在动态,他们对肿瘤细胞进行了拟时序分析,将DTC的发育过程解析为四个不同的分子阶段(图1B)。大多数(81.81%)处于第1阶段的DTC在T1和T2时能观察到,而96.61%处于第2阶段的DTC在T3和T4时能观察到,72.02%处于第3阶段的DTC在T5至T7时能观察到,74.89%处于第4阶段的DTC在T8和T9时能观察到。
为了研究DTC及其微环境的动态变化,他们将DTC微环境单元定义为一个50 × 50 μm2的区域,该区域由围绕一个推测的肿瘤细胞点的两层连续的bin20斑点组成(图1C)。DTC微环境中的免疫细胞浸润与大小匹配的随机非DTC微环境存在显著差异(图1C)。在接种后(T1至T2),中性粒细胞在DTC微环境中占主导地位,随后在T3时募集了包括髓系细胞和NK细胞在内的固有免疫细胞。在T5至T6时,当肿瘤细胞数量稀少时,大多数类型免疫细胞的浸润也显著减少。在增殖期(T8至T9),DTC微环境富集了适应性免疫成分,包括CD4+辅助性T细胞、CD8+T细胞和调节性T细胞(Treg细胞),以及间质巨噬细胞(IM)。免疫组化染色、流式细胞和scRNA-seq验证了这些免疫细胞群的动态变化。根据细胞类型比例进行无监督聚类分析,将DTC微环境解析为四个不同的聚类,这些聚类与采样时间点同步(图1D)。
肿瘤细胞分子阶段(四个阶段)与DTC微环境聚类(四个聚类)的比对结果显示,二者具有显著的时间同步性(图1E),表明DTC及其周围微环境在转移性定植过程中共同进化。总体而言,DTC微环境中的免疫浸润在第1阶段和第2阶段早期增加,在第2阶段中后期维持在高水平,在第3阶段迅速下降,最终在第4阶段再次升高。随着时间的推移,DTC微环境从固有免疫向适应性免疫转变,这体现在适应性免疫细胞与固有免疫细胞比例的持续增加上(图1F)。
接下来,他们对肿瘤细胞四个阶段的分子动力学和肿瘤免疫相互作用进行了表征。中性粒细胞主要通过Cxcl1、Cxcl2、Cxcl3和Cxcl5与其受体Cxcr2之间的相互作用募集到I期肿瘤细胞的DTC微环境中(图1G)。scRNA-seq数据支持了这一结论,该数据表明肿瘤细胞主要表达中性粒细胞趋化因子Cxcl1、Cxcl2、Cxcl3和Cxcl5。此外,I期肿瘤细胞表现出高表达的早期反应基因(Nr4a1、Dusp1、Fos、Jun和Egr1),反映了其对中性粒细胞介导的细胞刺激的快速反应(图1E-G)。先前的研究报道,在早期转移进展过程中,这些基因在循环肿瘤细胞(CTC)中获得染色质可及性。II期肿瘤细胞的微环境显示出髓系细胞浸润增加,包括单核细胞、IM和常规I型树突状细胞(cDC1)(图1G),这些细胞通过Csf1 - Csf1r、Ccl2-Ccr2和Cx3cl1-Cx3cr1轴募集,而这些轴由肿瘤细胞、IM、肺泡巨噬细胞(AM)、单核细胞和树突状细胞(DC)介导。 NK细胞浸润DTC微环境的高峰出现在第二阶段,其主要通过NK细胞和Ccr7+ DC介导的Ccl4 / Ccl5-Ccr5轴实现(图1G)。第二阶段肿瘤细胞上调趋化因子(Ccl2、Ccl4和Cxcl10)以及参与干扰素-γ(IFN-γ)反应(Irf1、Stat1和Gbp2)、肿瘤坏死因子(TNF)信号通路(Tnf和Nfkbia)和细胞凋亡信号通路(Mdm2、Casp3和Krt8)的基因(图1E-G)。这些通路的活性与DTC微环境中固有免疫细胞的浸润动态同步(图1G)。这与scRNA-seq数据的时间序列分析结果相符。在第3期,DTC微环境中的免疫细胞数量显著减少,导致微环境免疫细胞稀少(图1F)。第3期肿瘤细胞的特征是PHGDH、Gsn、Scd1和Ckb高表达,以及G2/M期检查点基因低表达所代表的增殖能力降低(图1E-G)。第4期肿瘤细胞的DTC微环境恢复了多样化的免疫浸润,这由与淋巴细胞和髓系细胞迁移相关的多个轴驱动(图1E-G)。第4期肿瘤细胞表现出Enpp2的上调,据报道Enpp2可抑制细胞毒性CD8+ T细胞的浸润。第4期肿瘤细胞还表现出免疫检查点和细胞增殖基因(E2F靶基因和G2/M检查点)的显著上调,以及上皮间质转化和凋亡相关基因的下调(图1G)。综上所述,这些结果表明,DTC与其微环境之间的相互作用可能在空间和时间维度上决定肿瘤转移(图1H)。
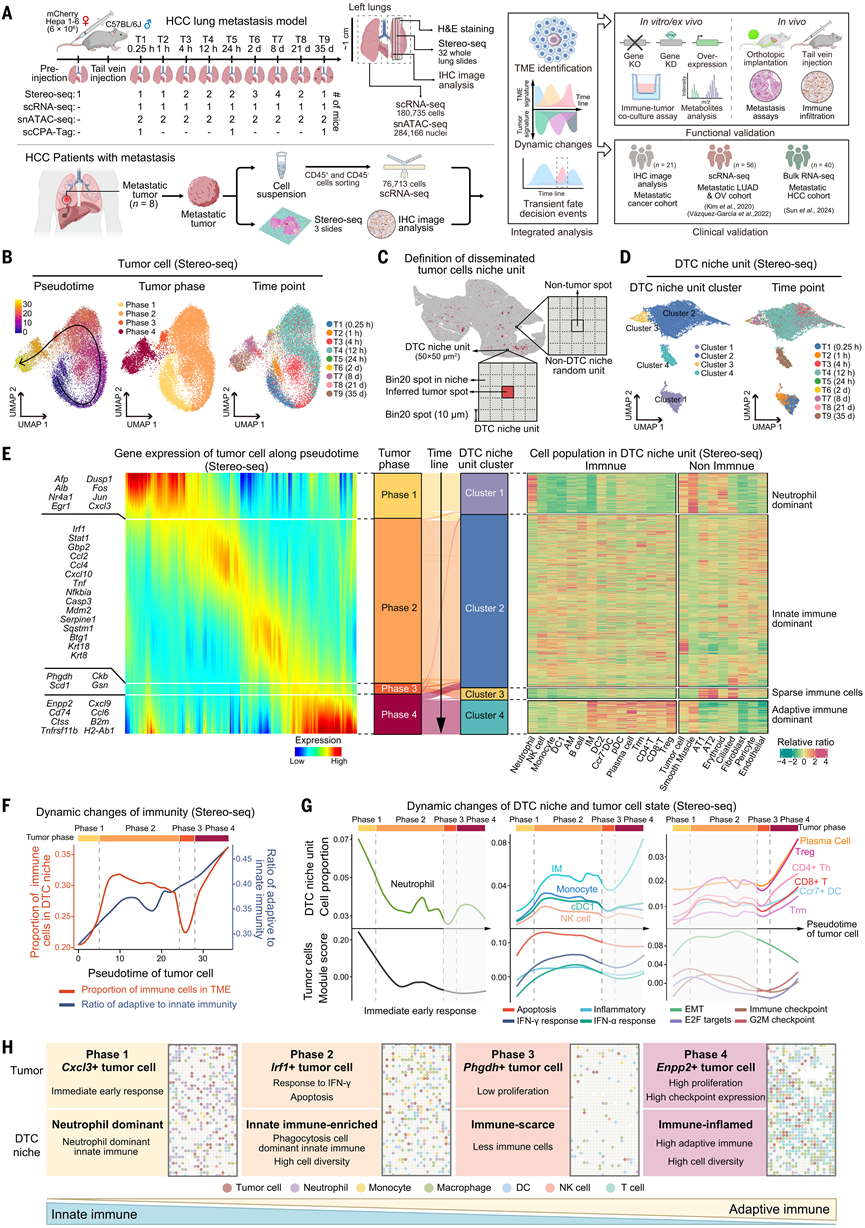
图1. 早期转移性定植的时空单细胞和空间多组学图谱。
(A) 研究设计示意图。(B) UMAP图显示了Monocle 3推断的肿瘤细胞拟时序轨迹(左)、肿瘤细胞生长的四个阶段(中)以及样本采集时间点(右)。(C) Stereo-seq定义的DTC微环境单元示意图。(D) DTC微环境单元的UMAP图,按聚类(左)和样本采集时间(右)进行颜色编码。(E) 左侧热图展示了肿瘤细胞在四个阶段的基因表达动态变化。中间的冲积图将每个阶段的肿瘤细胞与其对应的DTC微环境单元连接起来。右侧热图表示DTC微环境中细胞类型的相对比例。(F) 总免疫细胞比例(红色)和适应性免疫细胞与固有免疫细胞比例(深蓝色)随拟时间变化的动态变化。(G) DTC微环境单元中免疫细胞比例(上)和肿瘤细胞标志模块评分(下)随拟时序变化的动态变化。(H) DTC微环境和肿瘤细胞在整个转移过程中时空特征的示意图总结。
02
静止期PHGDHhigh的肿瘤细胞在微转移灶中短暂富集,并栖息于免疫细胞稀少的微环境中
虽然大多数DTC在免疫清除后清除,但仍有一小部分存活下来。在转移早期,3期肿瘤细胞相对较少(平均0.5%),但在T5至T7期间短暂富集,约占存活肿瘤细胞的一半(平均44%)(图2A)。3期肿瘤细胞的短暂增加可能是由转移过程中肿瘤微环境信号诱导的。接下来,他们研究了这些残留肿瘤细胞及其DTC微环境的分子特征。
差异表达基因(DEG)分析显示,与其它阶段的肿瘤细胞相比,3期肿瘤细胞中存在29个上调基因和373个下调基因(图2B)。下调的DEG显著富集于细胞增殖相关的信号通路(图2C)。与此一致的是,3期肿瘤细胞表现出静止期的分子特征,包括mRNA分子数量减少以及细胞增殖相关基因(Mki67、Cdk1、Top2a和Ccna2)表达降低,尤其是在G1期。此外,3期肿瘤细胞表现出参与免疫反应的基因(Irf1、Gbp2、Ifitm3、Nfkb2、Cxcl10和Ccl2)和通路表达受到抑制(图2B-C),提示它们可能促进或构成免疫细胞稀少的微环境。与其它阶段或随机微环境相比,3期肿瘤细胞的DTC微环境中免疫细胞浸润减少(图2D-E)。3期肿瘤细胞表现出PHGDH、Fah、Chil3和Filip1l的高表达,这些基因与氨基酸代谢相关(图2B-C)。PHGDH是3期肿瘤细胞中上调最显著且表达频率最高的基因之一(76%);因此,他们利用该方法追踪了3期肿瘤细胞(PHGDHhigh肿瘤细胞)(图2B)。肺组织切片的免疫荧光染色显示,在T5至T6时间点PHGDH+肿瘤细胞富集。与PHGDH-肿瘤细胞相比,这些细胞的Ki-67表达较低(图2F),且其微环境中的免疫细胞浸润也较少(图2G)。
为了验证研究结果在不同模型中的适用性,他们使用BALB/c小鼠进行了体内实验,分别采用自发性肝细胞癌肺转移模型和肝内转移模型,并引入增强型绿色荧光蛋白(EGFP)标记的小鼠肝细胞癌H22细胞系(图2H)。免疫荧光染色(mIF)结果显示,PHGDH+H22细胞在微转移灶中大量存在,但在原发肿瘤和巨转移灶中数量较少(图2I)。此外,微转移灶中PHGDH+H22细胞的微环境免疫细胞浸润较少,这与PHGDH-细胞的微环境形成鲜明对比(图2J)。
为了探究大转移病灶是源于预先存在的PHGDH+细胞的克隆遗传还是动态的细胞重编程,他们构建了一个体内双报告基因谱系追踪系统。该系统能够实时监测活性PHGDH转录(mOrange),同时对具有PHGDH激活历史的细胞进行永久标记(EGFP)。在早期时间点(T2),肿瘤细胞主要为 mCherry+,表明仅存在基础PHGDH表达(图2K-L)。在微转移阶段(T6,第 3 期),强烈的 mOrange 信号和最初出现的EGFP+细胞标志着PHGDH瞬时激活的开始。到 T8(第 4 期),大转移病灶主要由EGFP+细胞构成(图2K-L)。这些结果表明,大多数大转移性肿瘤细胞来源于在第 3 阶段短暂激活PHGDH的祖先 DTC。
接下来,他们研究了PHGDH高表达肿瘤细胞在人类癌症中的相关性。在人类HCC中,与匹配的肺转移灶相比,微血管侵犯(MVI)病灶中PHGDH的表达显著更高,这与早期扩散过程中PHGDH的瞬时富集相一致。在HCC淋巴结转移灶中,mIF显示,分离的肿瘤细胞中PHGDH的高表达与Ki-67的低表达相关(图2M)。对人类肺转移灶的Stereo-seq分析鉴定出一个PHGDH高表达样恶性细胞亚群,这些细胞始终位于免疫细胞稀少的微环境中。此外,人类HCC转移灶中PHGDH的表达与估计的免疫细胞浸润(包括CD4+ T细胞、CD8+ T细胞和树突状细胞)呈负相关,而这种相关性在原发性HCC肿瘤中并不存在。随后,他们评估了这些模式是否也适用于其他癌症类型。在三个scRNA-seq数据集中,包括HCC肺转移瘤以及另外两种人类转移性肿瘤[肺腺癌(LUAD)和卵巢癌(OV)],一小部分恶性细胞(平均0.4%)表现出PHGDH高表达肿瘤细胞特征基因的富集,并命名为PHGDH高表达样肿瘤细胞。人类转移瘤中的PHGDH高表达样肿瘤细胞也显示出mRNA分子数量显著减少,并且趋化因子基因(Ccl2、Cxcl2和Cxcl10)的表达降低(图2N)。此外, HCC、乳腺癌 (BRCA)、结直肠癌 (CRC) 和LUAD淋巴结中的分离肿瘤细胞表现出更高的 PHGDH 表达,且与大转移灶相比,其微环境中浸润的CD45+免疫细胞较少(图 2O-P)。为了评估其预后意义,他们使用PHGDH高表达肿瘤细胞的特征评分,并利用批量 RNA-seq 数据估计了其在多个转移性肿瘤队列中的丰度。生存分析表明,在转移性 HCC、转移性乳腺浸润性导管癌 (IDC) 和结直肠腺癌 (COAD) 队列中,较高的PHGDH高表达特征评分与较差的临床结局相关(图 2Q)。总之,在转移性定植过程中短暂富集的PHGDH高表达肿瘤细胞亚群,其特征是增殖和免疫相关信号传导受到抑制,并且存在于免疫细胞稀少的微环境中。
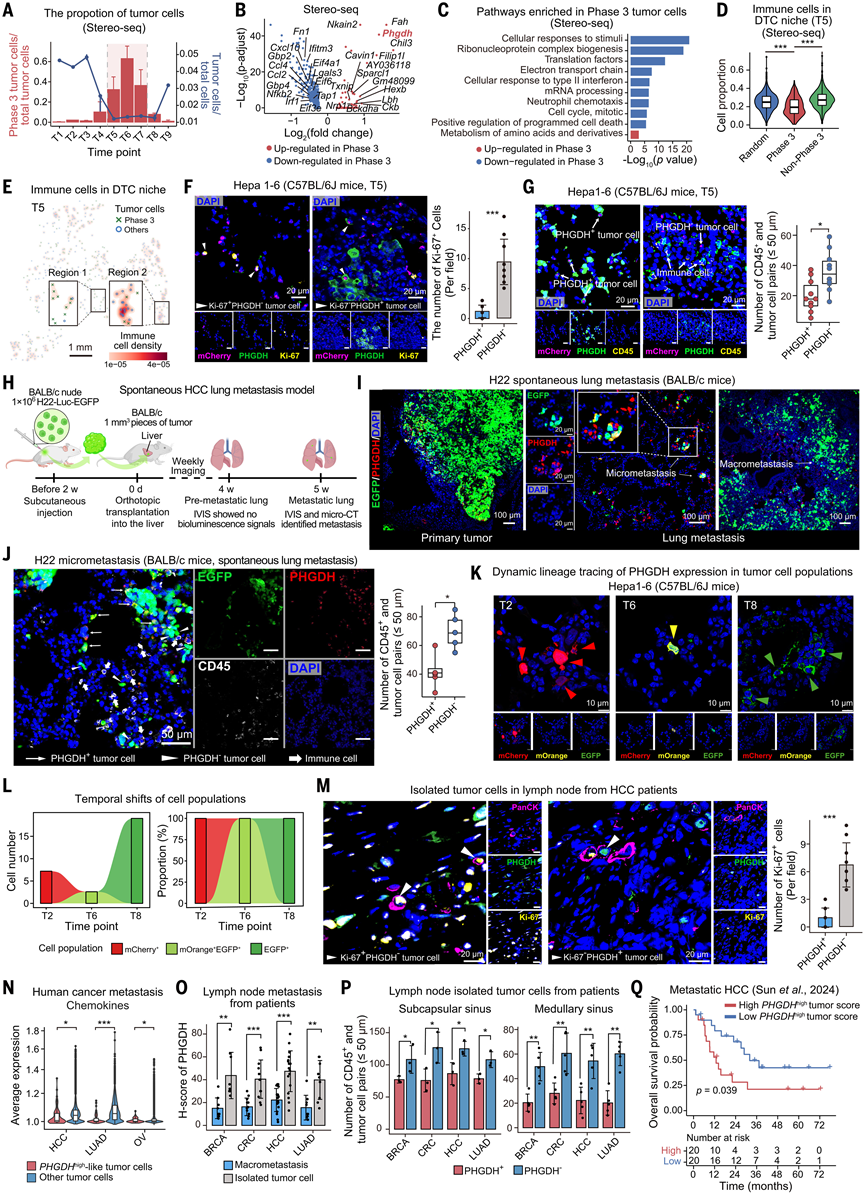
图2. 静止的PHGDHhigh肿瘤细胞是免疫稀缺生态系统的特征。
(A) 不同时间点肺组织中肿瘤细胞占所有细胞的百分比(蓝线)以及3期肿瘤细胞占总肿瘤细胞的百分比(红柱)。(B) 火山图展示了3期肿瘤细胞中的差异表达基因(DEG)。(C) 3期肿瘤细胞中上调(红色)和下调(蓝色)基因的通路分析,统计学显著性通过超几何检验确定。(D) 比较3期及其他时期肿瘤细胞中随机非DTC微环境区域和DTC微环境中的免疫细胞比例。(E)3期肿瘤细胞及其他时期肿瘤细胞DTC微环境中的免疫细胞密度。(F) T5肺组织切片中Ki -PHGDH+和Ki-67 + PHGDH -肿瘤细胞的代表性mIF图像(左)。(G) 代表性mIF图像(左)显示了T5时肺组织中Ki-67 +肿瘤细胞计数。(H) T5时肺组织中PHGDH+或PHGDH-肿瘤细胞周围50 μm半径内的CD45+细胞计数。(I)代表性mIF图像显示了自发性HCC小鼠模型中原发肿瘤组织、肺微转移灶和巨转移灶中PHGDH+肿瘤细胞的丰度。(J) 代表性的mIF图像(左)显示了自发性HCC小鼠模型肺微转移灶中CD45+免疫细胞与PHGDH+或PHGDH-肿瘤细胞之间的空间关系。比例尺,50 μm。(右)自发性HCC小鼠模型肺微转移灶中PHGDH+或PHGDH-肿瘤细胞周围50 μm半径内的CD45+免疫细胞计数。(K)代表性的mIF图像显示了HCC肺转移进展过程中PHGDH的表达。(L-M)转移进展过程中标记细胞群的时间变化。(N) 小提琴图显示了转移性HCC scRNA-seq数据集以及已发表的转移性LUAD和OV scRNA-seq数据集中PHGDH高表达样细胞和其他肿瘤细胞的平均趋化因子表达。(O)各种人类癌症中淋巴结分离的肿瘤细胞和宏观转移灶中PHGDH表达的H评分(每位患者随机选择三个分离的肿瘤细胞视野和三个宏观转移灶视野)。(P)各种人类癌症淋巴结微转移灶中PHGDH+或PHGDH-肿瘤细胞周围50 μm半径内的CD45+细胞计数。(Q) Kaplan-Meier生存分析。
03
PHGDH通过抑制免疫浸润来增强转移性定植
接下来,他们通过体内、体外和离体实验研究了PHGDH在调控转移性定植中的作用。将PHGDH敲除(PHGDH KO)和对照或野生型(PHGDH WT)小鼠细胞系,包括Hepa 1-6 HCC、H22 HCC、B16-F10黑色素瘤和MC38 CRC细胞系,以及PHGDH过表达(PHGDH OE)和对照(载体)H22细胞,注射到免疫功能正常或免疫缺陷小鼠的尾静脉中(图3A)。体外实验表明,PHGDH过表达显著抑制了肿瘤细胞增殖,这与PHGDH高表达的DTC中观察到的低增殖表型一致。在Hepa 1-6模型中,对T5时DTC及其微环境的分析表明,与PHGDH敲除(KO)肿瘤细胞相比,对照组肿瘤细胞微环境中浸润的免疫细胞较少(图3B-C)。PHGDH KO大转移灶的DTC微环境也显示出比PHGDH野生型(WT)大转移灶更高的免疫细胞浸润(图3D-E)。此外,与对照组细胞相比,PHGDH KO细胞的转移负荷较低。相反,PHGDH OE细胞的转移负荷高于对照组,这种现象仅在免疫功能正常的小鼠中观察到,而在免疫缺陷小鼠中未观察到(图3F)。尾静脉注射后24小时(T5,第3阶段)瞬时体内敲低PHGDH可显著抑制免疫功能正常小鼠的转移灶生长(图3G)。此外,在原位肝细胞癌模型中,对照组和PHGDH KO组在原发肿瘤生长或CTC负荷方面没有差异(图3H-I),而PHGDH KO组的肺转移灶数量少于对照组(图3J)。这些体内结果表明,PHGDH通过抑制抗肿瘤免疫细胞的浸润来促进转移性定植。进一步的共培养实验从功能上验证了PHGDH KO细胞增加了CD3+ T细胞和NK细胞的募集,而与对照细胞相比,PHGDH OE的细胞在小鼠Hepa 1-6细胞和人Huh7肝癌细胞中均抑制了这种募集(图3K)。这些结果表明,PHGDH通过创造免疫细胞稀少的微环境来促进转移性播散。
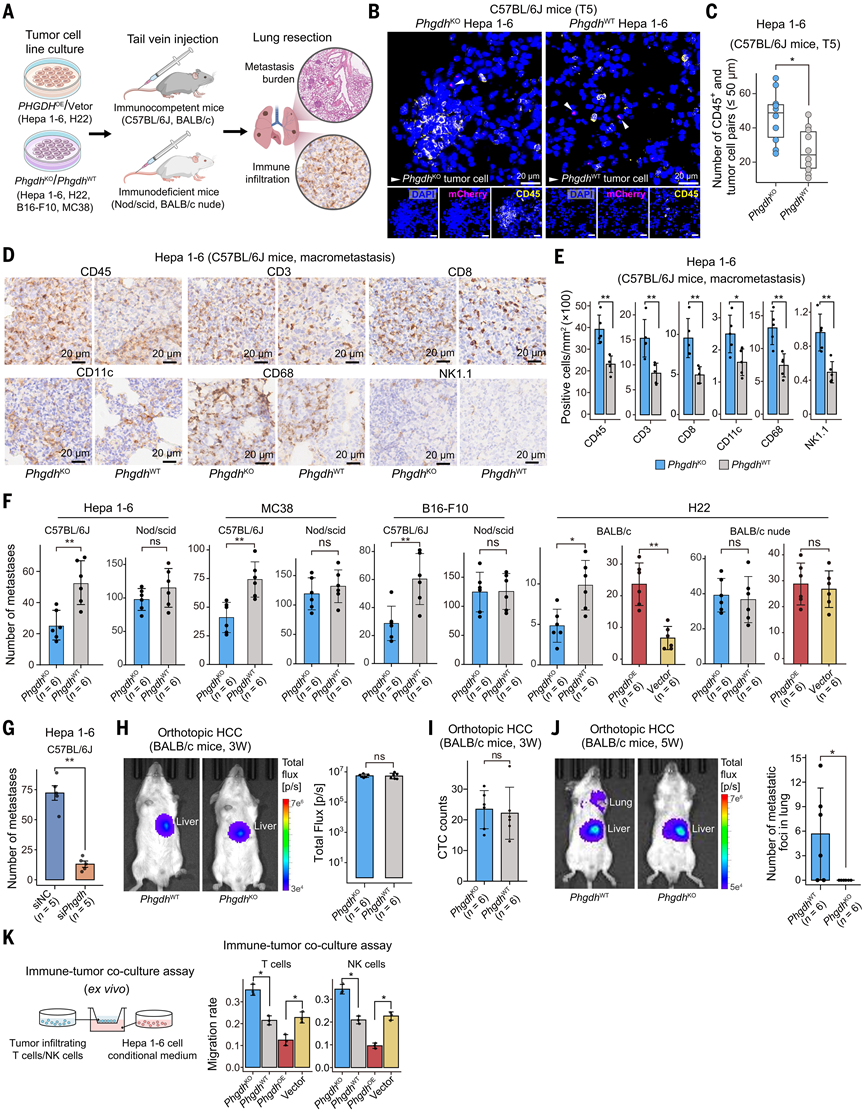
图3. PHGDHhigh的肿瘤细胞通过减少免疫浸润促进转移性定植。
(A) 体内转移定植实验示意图,将PHGDH基因沉默、PHGDH基因过表达或对照小鼠细胞系注射到免疫功能正常和免疫缺陷小鼠的尾静脉中。(B) 代表性的mIF图像显示了PHGDH KO或PHGDH WT肿瘤细胞与CD45+免疫细胞之间的空间关系。比例尺,20 μm。(C) 在C57BL/6J小鼠肺微转移灶中,于T5(24小时)时,对PHGDH KO或PHGDH WT Hepa 1-6肿瘤细胞周围50 μm半径内的CD45+细胞进行定量分析。每个点代表一只小鼠的整个肺组织切片;每组n = 10只小鼠。(D) C57BL/6J小鼠注射PHGDH KO或PHGDH WT Hepa 1-6细胞后,T9(35天)时肺部大转移灶中免疫细胞的代表性IHC染色。比例尺,20 μm。(E) C57BL/6J小鼠注射PHGDH KO或PHGDH WT Hepa 1-6细胞后,肺部大转移灶中各种免疫细胞的定量分析。(F) 免疫功能正常和免疫缺陷小鼠注射不同基因改造小鼠细胞系后,转移负荷的定量分析(每组n = 6只小鼠)。(G) 注射载体或siPHGDH转染的Hepa 1-6细胞的小鼠肺部转移结节的定量分析(n = 6)。 (H) 注射PHGDH KO(n = 6)或PHGDH WT(n = 6)H22细胞3周后,对原位HCC BALB/c小鼠进行体内生物发光成像(左图)和总通量定量(右图)。(I) 对注射PHGDH KO(n = 6)或PHGDH WT(n = 6)H22细胞的原位HCC BALB/c小鼠进行CTC定量。(J) 注射PHGDH KO(n = 6)或PHGDH WT(n = 6)H22细胞5周后,对原位HCC BALB/c小鼠进行体内生物发光成像(左图)和肺部转移灶数量(右图)。(K) 免疫细胞-肿瘤细胞共培养实验示意图,以及肿瘤浸润T细胞和NK细胞与不同基因改造的Hepa 1-6细胞共培养后的迁移率。
04
PHGDH通过表观遗传沉默趋化因子转录,塑造免疫细胞稀少的转移微环境
接下来,他们研究了PHGDH高表达的3期肿瘤细胞建立免疫稀少转移微环境的分子机制。与1期和2期肿瘤细胞相比,3期肿瘤细胞中多种参与免疫募集的趋化因子(Cxcl9、Cxcl10、 Ccl2 、Cxcl3、Cxcl2、Cxcl5和Cx3cl1)的表达降低。调控这些趋化因子的关键转录因子,包括Rela、Nfkb1、Irf1和Stat1,在3期肿瘤细胞中也表现出较低的调控子活性。进一步分析表明,在PHGDH高表达的肿瘤细胞中,PHGDH与趋化因子转录因子调控子活性和炎症相关通路活性呈最强的负相关(图4A)。在小鼠和人肝癌细胞系(Hepa 1-6 和 Huh7)中, PHGDH的缺失增加了趋化因子及其相关转录因子(Rela和Stat1)的表达,并上调了免疫反应相关通路;而PHGDH的过表达则在 RNA 和蛋白水平上均下调了这些因子的表达(图 4B)。这些结果表明,PHGDH是趋化因子表达的关键抑制因子。
PHGDH是丝氨酸代谢的限速酶,它为一碳代谢提供碳原子,并生成S-腺苷甲硫氨酸(SAM),后者是组蛋白甲基化的甲基供体(图4C )。因此,PHGDH可能通过促进SAM介导的甲基化来抑制趋化因子的表达。与其它肿瘤细胞和其它微环境细胞相比,PHGDH高表达肿瘤细胞的丝氨酸代谢模块评分更高。在人类转移数据集中,PHGDH高表达样转移性肿瘤细胞与其他肿瘤细胞相比也观察到了类似的趋势。在小鼠和人肝癌细胞中,PHGDH的缺失减弱了丝氨酸代谢途径的激活,并降低了丝氨酸代谢和蛋氨酸循环的关键代谢物(包括丝氨酸、蛋氨酸和SAM)的丰度,这通过质谱分析得以证实。相反,PHGDH的过表达增加了这些代谢物的水平(图4D)。
据报道,SAM能够调控主要的抑制性组蛋白甲基化标记——组蛋白H3第27位赖氨酸三甲基化(H3K27me3)。在PHGDH高表达的肿瘤细胞中,与来自人和小鼠转移性肿瘤的其他肿瘤细胞相比,观察到更高水平的多梳抑制复合物2(PRC2)表达,PRC2能够正向调控H3K27me3。对小鼠T5肺微转移灶和人肝细胞癌淋巴结微转移灶的mIF分析证实,与PHGDH阴性肿瘤细胞相比,PHGDH阳性肿瘤细胞中H3K27me3水平更高(图4E)。此外,在过表达PHGDH的Huh7细胞中,H3K27me3水平上调,而3-脱氮腺苷A(DZNep,一种SAM依赖性酶如EZH2的抑制剂)可逆转这一效应(图4F)。使用EZH2特异性抑制剂tazemetostat处理后,EZH2的占位率和H3K27me3水平也同样降低。综上所述,这些数据表明PHGDH的表达促进了DTC中SAM介导的H3K27me3上调。
接下来,他们评估了H3K27me3是否在转移过程中调控肿瘤细胞中的趋化因子基因转录。应用单细胞染色质蛋白和可及性标签(scCPA-Tag)这一多模态表观遗传分析技术,研究了T1、T5和T9时间点肿瘤细胞中H3K27me3和染色质可及性的变化,分别代表肿瘤转移的第1、3和4阶段(图2A)。T5时间点的肿瘤细胞中H3K27me3片段数量最高,表明H3K27me3在PHGDH高表达的肿瘤细胞中比其他肿瘤细胞具有更强的转录沉默作用(图4G)。对T5肿瘤细胞中H3K27me3水平升高的基因进行富集分析,揭示了与细胞因子反应、炎症和白细胞活化相关的多种通路,表明H3K27me3抑制了3期肿瘤细胞中的免疫通路(图4H)。与T1和T9肿瘤细胞相比,T5肿瘤细胞中的趋化因子基因座显示出更高的H3K27me3修饰水平,这与趋化因子基因的沉默相一致(图4I)。参与趋化因子和炎症反应的转录因子(RELA、IRF1和NFKB2)的靶基因在T5小鼠肿瘤细胞中显示出染色质可及性降低和H3K27me3水平升高。PHGDH KO的肿瘤细胞在单细胞水平和混合细胞水平上,趋化因子基因和趋化因子 TF 靶点的 H3K27me3 水平降低(图 4J)。
为了确定DZNep诱导的H3K27me3耗竭(图4F)是否能够挽救PHGDH高表达肿瘤细胞中受损的趋化因子转录和免疫细胞募集能力,他们用DZNep处理了肿瘤细胞。结果显示,DZNep处理显著提高了PHGDH野生型Hepa 1-6细胞、PHGDH过表达Hepa 1-6细胞和PHGDH过表达Huh7细胞中Ccl2、Cxcl10和Cxcl2的蛋白和mRNA水平(图4K)。共培养实验表明,DZNep处理PHGDH过表达Huh7细胞后,肿瘤浸润T细胞和NK细胞的募集得以恢复。在免疫功能正常的鼠体内进行的实验表明,与PHGDH KO小鼠类似,DZNep能够恢复免疫浸润,并显著降低PHGDH WT肿瘤细胞在微转移(图4L-N)和巨转移(图4O-P)阶段的转移负荷。此外,DZNep抑制了PHGDH OE肿瘤细胞的肺转移,但对PHGDH缺失的细胞没有影响(图4O-P)。相反,DZNep对免疫缺陷小鼠的转移负荷没有影响(图4O-P)。接下来,他们用 FIDAS-5 治疗小鼠,FIDAS-5 是一种口服有效的甲硫氨酸 S-腺苷转移酶 2A (MAT2A) 抑制剂,MAT2A 是 SAM 合成所必需的酶。这种治疗产生了与 DZNep 类似的效果,进一步支持了 SAM 介导的 H3K27me3 在促进转移进展中的作用。
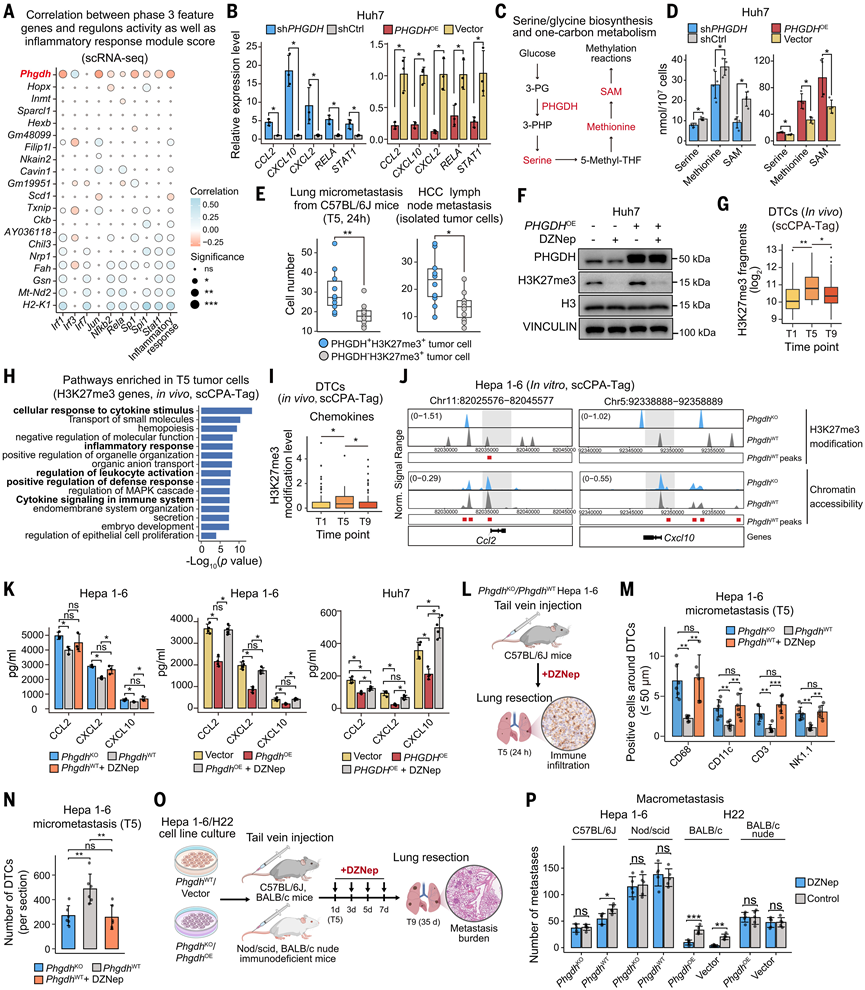
图4. PHGDH通过表观遗传沉默趋化因子基因转录来诱导免疫稀少的微环境。
(A) 3期肿瘤细胞标志基因表达与趋化因子靶向转录因子基因的调控活性以及炎症通路模块评分之间的相关性。点的大小代表显著性水平,颜色代表相关性强度。(B) PHGDH敲低(sh PHGDH)和对照Huh7细胞以及PHGDH过表达和对照Huh7细胞之间趋化因子和转录因子相对表达的比较(每组n =3个生物学重复)。(C) 丝氨酸/甘氨酸生物合成和一碳代谢通路示意图,关键酶和代谢物以红色突出显示。(D) PHGDH敲低肿瘤细胞和PHGDH过表达Huh7细胞中丝氨酸-蛋氨酸代谢物的浓度(每组n =4个生物学重复)。 (E)小鼠模型肺微转移灶(n = 10 只小鼠,评估全肺切片)和肝细胞癌淋巴结分离肿瘤细胞中 PHGDH+ H3K27me3 +和 PHGDH+ H3K27me3−肿瘤细胞的数量。(F) Western blot 显示经 DZNep 处理或未处理的PHGDH过表达和对照 Huh7 细胞中 H3K27me3 的水平。( G ) 箱线图比较不同时间点肿瘤细胞中 H3K27me3 片段的数量。(H) T5 肿瘤细胞中 H3K27me3 高修饰基因的通路分析(免疫相关通路以粗体显示),统计学显著性通过超几何检验确定。(I) T1、T5 和 T9 时DTC中趋化因子基因座的 H3K27me3 修饰水平。(J)图中显示了PHGDH KO和PHGDH WT Hepa 1-6细胞中趋化因子基因座的H3K27me3修饰和染色质可及性,峰值区域用红色条标记。(K) 图中显示了PHGDH KO、PHGDH WT和DZNep处理的PHGDH WT Hepa 1-6细胞以及PHGDH过表达、DZNep处理的PHGDH过表达和对照Hepa 1-6和Huh7细胞中分泌的CCL2、CXCL2和CXCL10的蛋白水平。(L) DZNep处理或未处理的体内免疫浸润实验示意图。(M-N) 对注射了PHGDH KO、PHGDH WT和 DZNep 处理的PHGDH WT Hepa 1-6 细胞的 C57BL/6J 小鼠肺微转移灶中各种免疫细胞进行定量分析(n = 6)。(O) 体内转移定植试验示意图(有或无 DZNep 处理)。(P) 在免疫功能正常和免疫缺陷小鼠中,不同基因改造的 Hepa 1-6 或 H22 细胞诱导的大转移灶数量。
05
Cx3cr1高表达的巨噬细胞为转移性生长建立了必要的微环境
在第三阶段免疫细胞稀少的DTC微环境形成后,DTC微环境中的免疫细胞数量在肿瘤细胞增殖之前逐渐增加(图5A)。这表明免疫微环境的重塑可能是转移性生长的先决条件。为了验证这一假设,他们定义了一个微转移到宏转移转变(MMT)期,该时期涵盖了从DTC微环境中免疫细胞数量增加的拐点到肿瘤细胞增殖的拐点之间的时间段(图5A)。在T7时,MMT占肿瘤细胞总数的49.6%。
在MMT期间,DTC微环境中所有免疫细胞亚群的浸润均增加,其中IM的比例最高(图5B)。与MMT前微环境中的IM相比,MMT期间的IM表现出更高的免疫抑制特征(Cx3cr1、Trem2和Sirpa)和M2特征(Itgav、Ctss、Ctsa和Csf1r)表达(图5C-D)。Cx3cr1是MMT期间IM中上调最显著的基因,他们将Cx3cr1高表达的IM定义为一个代表性亚群(图5C)。亚聚类分析也鉴定出了Cx3cr1高表达的IM群体,结果显示该亚群在MMT期间Cx3cr1表达较高且占主导地位。MMT中的肿瘤细胞表现出高表达Cx3cl1,这可能促进高表达Cx3cr1的IM募集到微环境中(图5E)。共培养实验证实,肿瘤细胞中Cx3cl1的敲除显著降低了CX3CR1+IM的募集(图5F)。此外,与对照细胞相比,Cx3cl1敲除的Hepa 1-6细胞的转移负荷较低(图5G)。考虑到AT2细胞与肿瘤细胞中PHGDH上调之间的关联,MMT过程中AT2细胞数量的减少可能降低肿瘤细胞中PHGDH的表达,从而减轻PHGDH介导的趋化因子产生的抑制。离体共培养实验表明,去除AT2细胞可诱导肿瘤细胞中Cx3cl1的表达。他们假设,肿瘤细胞通过Cx3cl1募集的Cx3cr1高表达的IM在 MMT 过程中发挥关键作用。
接下来,他们重点研究了Cx3cr1高表达的IM在MMT过程中塑造DTC微环境的作用。配体-受体相互作用分析表明,Cx3cr1高表达的IM产生的趋化因子(Cxcl16、Cxcl2和Ccl7/8)可能募集其他免疫细胞,包括Cxcr6+Treg细胞、Cxcr2+中性粒细胞和Ccr1+ AM(图5H-I)。离体共培养实验表明,与CX3CR1 +IM共培养时,Treg细胞、中性粒细胞和AM的迁移率显著升高(图5J)。通过Cxcl2 - Cxcr2轴由Cx3cr1高表达的IM募集的嗜中性粒细胞,与1 期嗜中性粒细胞相比,其未成熟特征(Camp、Ngp、Chil3、Lcn2和Ltf)表达更高,炎症相关基因(Clec4e、Fas、Nfkbia、Il1b和Csf1)表达更低(图 5I)。在 MMT 过程中,可能主要由通过 Ccl7/8-Ccr1 轴由Cx3cr1高表达的IM募集的AM表现出高表达的促肿瘤 M2 特征(图5I)。mIF染色证实了在MMT期间DTC微环境中Cx3cr1高表达的IM、Treg细胞和中性粒细胞的空间共定位。在MMT窗口期(第2至8天),使用CSF1R中和抗体清除小鼠体内的IM,导致大转移灶中CD68+巨噬细胞、CD4+FOXP3+ Treg细胞和Ly6G+中性粒细胞的浸润减少,且转移负荷低于对照组小鼠(图5K-M)。为了进一步评估Cx3cr1高表达的IM对转移进展的功能贡献,他们进行了过继转移实验(图5N)。接受CX3CR1+细胞的小鼠在MMT窗口期(第2至8天),肺部的IM在T8(第21天)表现出显著的植入(图5O-P)。病理学评估进一步证实,与注射CX3CR1-IM或磷酸盐缓冲液(PBS)的小鼠相比,注射CX3CR1+ IM的小鼠表现出显著更高的转移负荷(图5Q)。总之,高表达CX3CR1的IM通过募集各种免疫抑制细胞,在MMT期间重塑了DTC微环境,从而为转移性肿瘤的生长创造了有利的微环境。
鉴于间质转化(MMT)过程中IM的富集,他们假设IM可能在驱动肿瘤细胞增殖中发挥作用。在这方面,配体-受体分析发现,在MMT DTC微环境中,肿瘤细胞与IM之间最显著富集的相互作用是Igf1-Igf1r相互作用(图5R)。Cx3cr1高表达的IMs表现出最高的Igf1相对表达水平,尤其是在MMT过程中(图5S)。由于IGF1是一种已知的生长因子,他们假设Cx3cr1高表达的IM可能通过IGF1-IGF1R轴促进肿瘤细胞增殖。离体共培养实验表明,CX3CR1阳性IM诱导Mki67上调并促进肿瘤细胞增殖,而IGF1中和则显著抑制肿瘤细胞的增殖能力(图5T-U)。
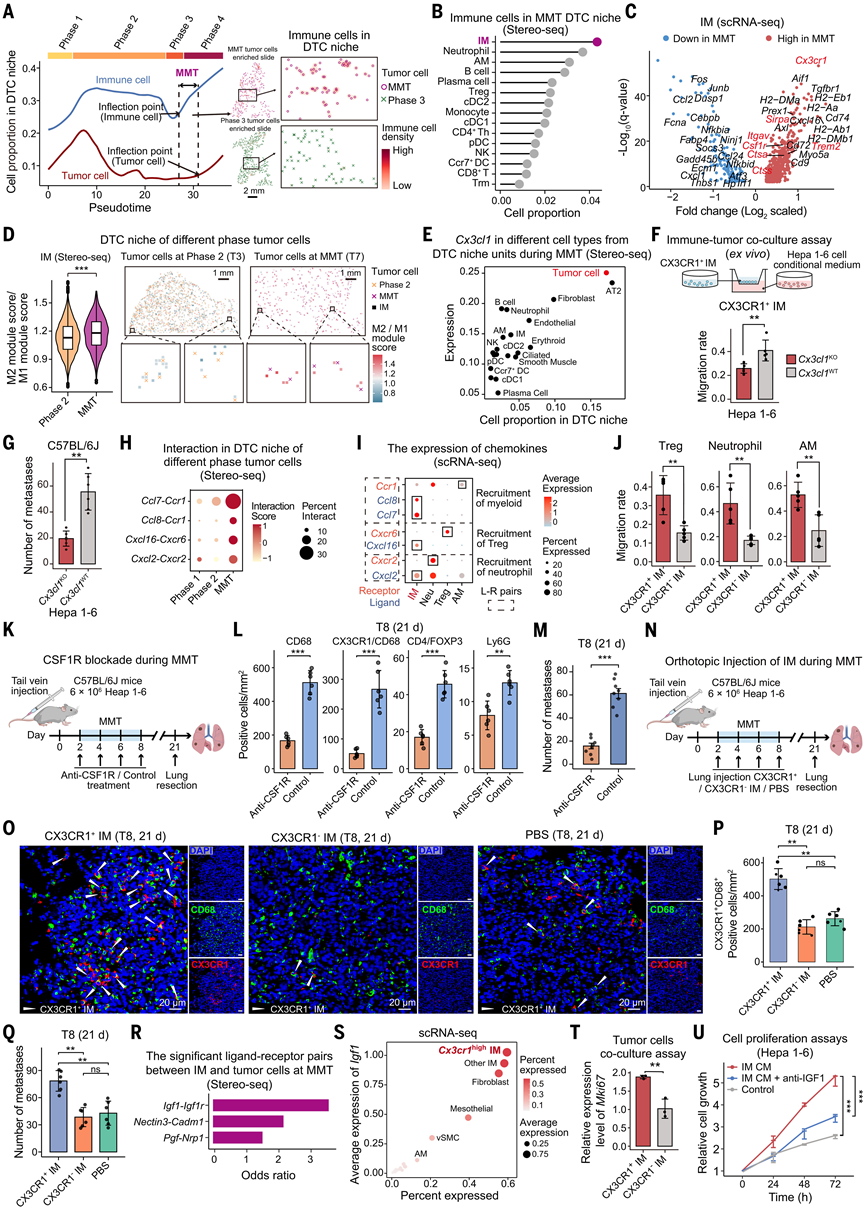
图5. Cx3cr1+巨噬细胞为转移性生长形成必要的微环境。
(A) 曲线代表DTC微环境中免疫细胞(蓝色)和肿瘤细胞(红色)在不同拟时序点的比例(左图)。图中还显示了MMT和第3阶段DTC微环境中肿瘤细胞中免疫细胞的密度(右图)。(B) MMT期间DTC微环境单元内免疫细胞的比例。(C) 火山图展示了MMT期间DTC微环境单元中免疫细胞的差异表达基因(DEG)与第2阶段DTC微环境单元中免疫细胞的差异表达基因。(D) MMT和第2阶段DTC微环境单元中免疫细胞的M2与M1模块得分比值。(E)MMT期间DTC微环境单元中Cx3cl1的平均表达量以及肿瘤细胞和各种免疫细胞的比例。(F) CX3CR1+ IM 与肿瘤细胞共培养实验的示意图(上图)以及 CX3CR1+ IMs 与Cx3cl1 KO或Cx3cl1 WT Hepa 1-6 细胞共培养后的迁移率(下图)(每组n = 5 个生物学重复)。(G)注射Cx3cl1 KO或Cx3cl1 WT Hepa 1-6 细胞的 C57BL/6J 小鼠的转移负荷定量分析(每组n = 6 只小鼠)。(H) 气泡图显示了不同阶段肿瘤细胞 DTC 微环境中趋化因子-受体对的相互作用评分。气泡大小表示表达每种趋化因子-受体对的 DTC 微环境比例,颜色强度代表相互作用评分。(I) IM和其他免疫细胞中趋化因子及其受体的表达。点的大小对应于表达该基因的细胞百分比,颜色反映基因表达水平。(J) Treg细胞、中性粒细胞和AM与CX3CR1+或CX3CR1−IM共培养后的迁移率(每组n =5个生物学重复)。(K) 体内转移定植实验示意图,将Hepa 1-6细胞注射到C57BL/6J小鼠尾静脉,并在MMT期间(第2至8天)进行抗CSF1R抗体治疗或不治疗。(L) 对T8(21天)时接受或未接受抗CSF1R治疗的小鼠肺组织切片中各种免疫细胞进行定量分析(每组n =6只小鼠)。(M) 条形图表示T8(21天)时接受或未接受抗CSF1R治疗的小鼠的转移负荷定量分析(每组n =6只小鼠)。(N-O)图示为体内转移性定植实验的示意图,将Hepa 1-6细胞注射到C57BL/6J小鼠的尾静脉中,并在MMT(第2至8天)期间分别向小鼠肺部注射CX3CR1+ IM、CX3CR1− IMs和PBS。(P) 定量分析在T8(21天)时,CX3CR1+ IMs、CX3CR1− IM和PBS处理组小鼠肺部切片中CX3CR1+IM的数量(每组n = 6只小鼠)。(Q) 柱状图表示T8(21天)时CX3CR1+IM、CX3CR1− IM和PBS处理组小鼠的转移负荷定量结果(每组n =6只小鼠)。(R)MMT DTC微环境中IM(配体)和肿瘤细胞(受体)之间最显著的配体-受体配对。(S) HCC肺转移的scRNA-seq数据中所有细胞类型中Igf1的表达。(T)柱状图显示IM中Mki67的相对表达。(U) 用PBS(对照)、IM条件培养基(CM)和含抗IGF1的IM条件培养基处理的Hepa 1-6肿瘤细胞的相对细胞生长速率差异。
+ + + + + + + + + + +
结 论
本研究整合了来自肝癌小鼠模型和人类转移灶的多模态单细胞和空间分析数据,追踪了DTC及其微环境从单细胞播散到明显肺转移的时空动态变化。本研究发现了一群存活下来的、处于静止状态的高表达PHGDH的DTC,它们在初始先天免疫清除后存活下来,并在微转移灶中短暂富集。这些细胞通过PHGDH依赖的、H3K27me3介导的趋化因子转录表观遗传沉默,构建了一个免疫稀缺的微环境,从而促进了转移灶的扩张。在DTC扩张之前,高表达Cx3cr1的间质巨噬细胞也短暂富集,它们通过募集免疫抑制细胞,为转移灶的生长创造了一个免疫豁免的微环境。在DTC中抑制 PHGDH-H3K27me3 轴或清除间质巨噬细胞可恢复免疫监视功能并抑制转移性定植。这些发现为开发针对微转移的治疗方案提供了新的思路。
+ + + + +