
 English
1052 株黄曲霉横跨四大洲:多组学揭示环境如何"筛选"出更毒的真菌
一句话看懂:花生、玉米一发霉,就可能长出分泌强致癌物的黄曲霉。这项研究把 1052 株黄曲霉(横跨四大洲,其中 544 株来自中国)放进同一套多组学框架,问了一个大问题:是谁在塑造真菌的"毒性"? 更关键的发现:产毒能力藏着强烈的"地理密码"——低纬度、中/南亚热带的菌株产毒更凶;而"无毒"菌株其实并不安全,它们往往转而生产其他毒素。泛基因组、mGWAS 与基因敲除层层推进,最终指向同一个结论:环境选择 + 调控与初级代谢的变异,共同驱动了真菌代谢的"重排"。 对研究者的启示:从群体基因组到群体代谢组,再到基因敲除的因果验证——这是一套"大样本 + 多组学 + 湿实验闭环"的标准范式。
一、研究背景:一颗"毒霉菌"的全球威胁
在食品安全领域,黄曲霉(Aspergillus flavus)可以说是头号"惯犯"。它广泛存在于土壤、花生、玉米等农作物中,能分泌黄曲霉毒素 B1(aflatoxin B1,AFB1)——被世界卫生组织列为一类致癌物,也是全球食品与饲料安全监管的重点对象。
问题在于,黄曲霉的"脾气"因地而异:有的菌株产毒凶猛,有的几乎不产毒。为什么同一物种,毒性差异如此之大? 在全球气候变暖、有害真菌爆发风险不断上升的背景下,这个问题的答案,直接关系到我们能否提前预测并精准防控。
二、研究设计:1052 株菌的"多组学全家桶"
研究团队做了一件很有野心的事:把来自四大洲的 1052 株黄曲霉(其中包括 2014–2019 年间从中国土壤、花生、玉米中分离并新测序的 544 株)整合起来,构建起目前规模领先的黄曲霉资源库。
采样范围本身就很有代表性——从北纬 24.3°(广东湛江)一直延伸到北纬 46.4°(黑龙江齐齐哈尔),跨越多个气候带。
在这个大样本上,研究同时铺开了七套分析:
- 群体系统发育与生物地理学(谁和谁是"亲戚",分布在哪); - 群体代谢组学(每株菌到底产什么、产多少); - 超泛基因组(所有基因的"并集"与"交集"); - BGC 变异分析(生物合成基因簇的增删); - 基因型–环境关联(GEA)(环境因子在挑选哪些基因); - 代谢物全基因组关联(mGWAS)(哪些位点决定产毒量); - 泛转录组 + 基因敲除(从关联走向因果)。
三、第一层:1052 株黄曲霉的全球"家谱"
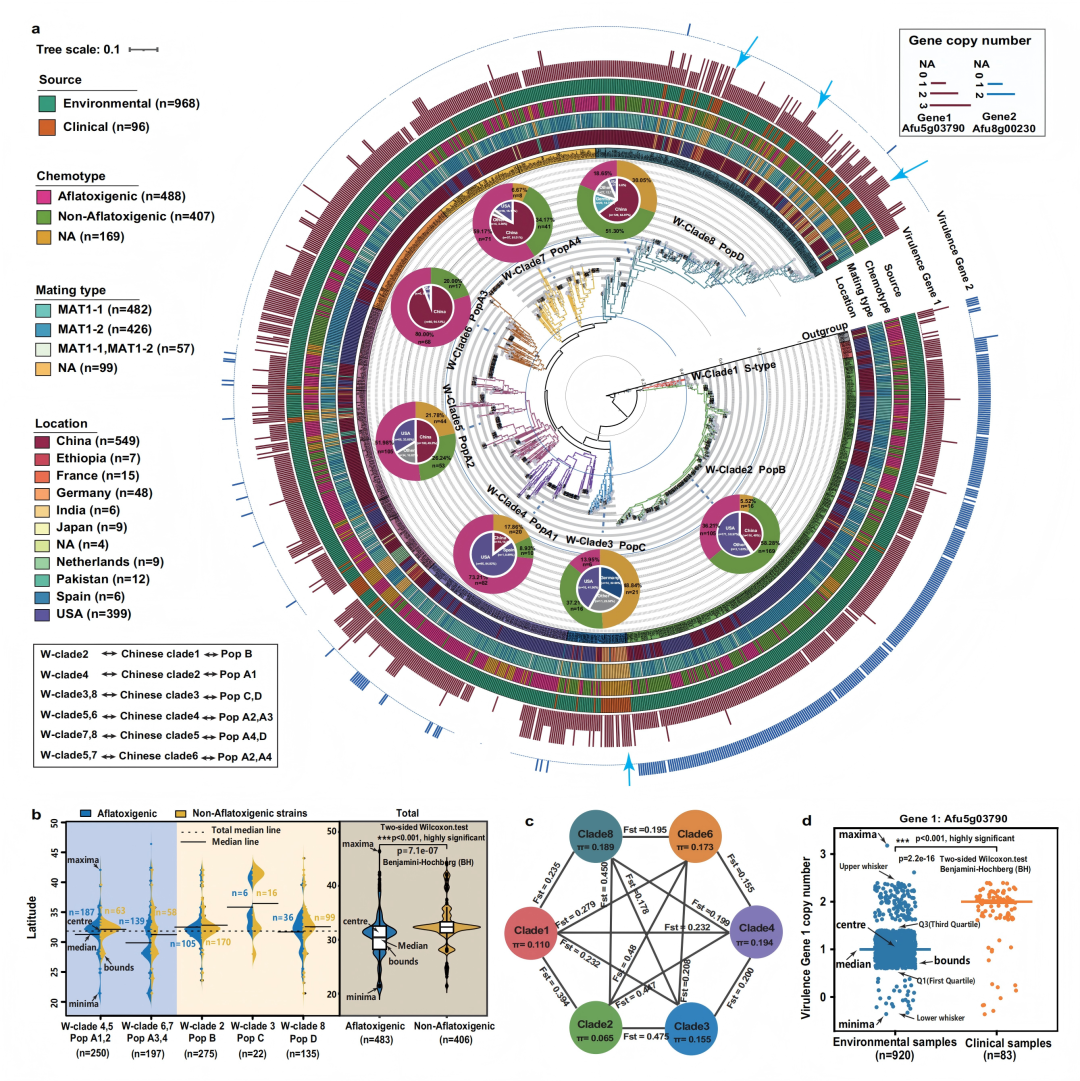
▲ 图1:1052 株全球“家谱”——进化枝与地理、生态位高度绑定,产毒能力呈纬度分层。
第一张图回答了"它们是谁、住在哪"。基于全基因组数据,1052 株黄曲霉被划分成一系列进化枝(W-clade 1–8、C-clade 1–5),并与以往定义的种群(PopA–D)相互对应。
关键在于,这些进化枝不是随机分布的,而是与地理和生态位高度绑定:不同枝系在纬度分布、环境来源(土壤 / 花生 / 玉米 / 临床)上各有偏好。研究进一步发现,产毒能力呈现明显的纬度分层——高温高湿的低纬度地区,菌株的产毒倾向更强。
一句话:黄曲霉的"家谱",本身就是一张地理与生态的地图。
四、第二层:中国菌株的产毒"地理学"
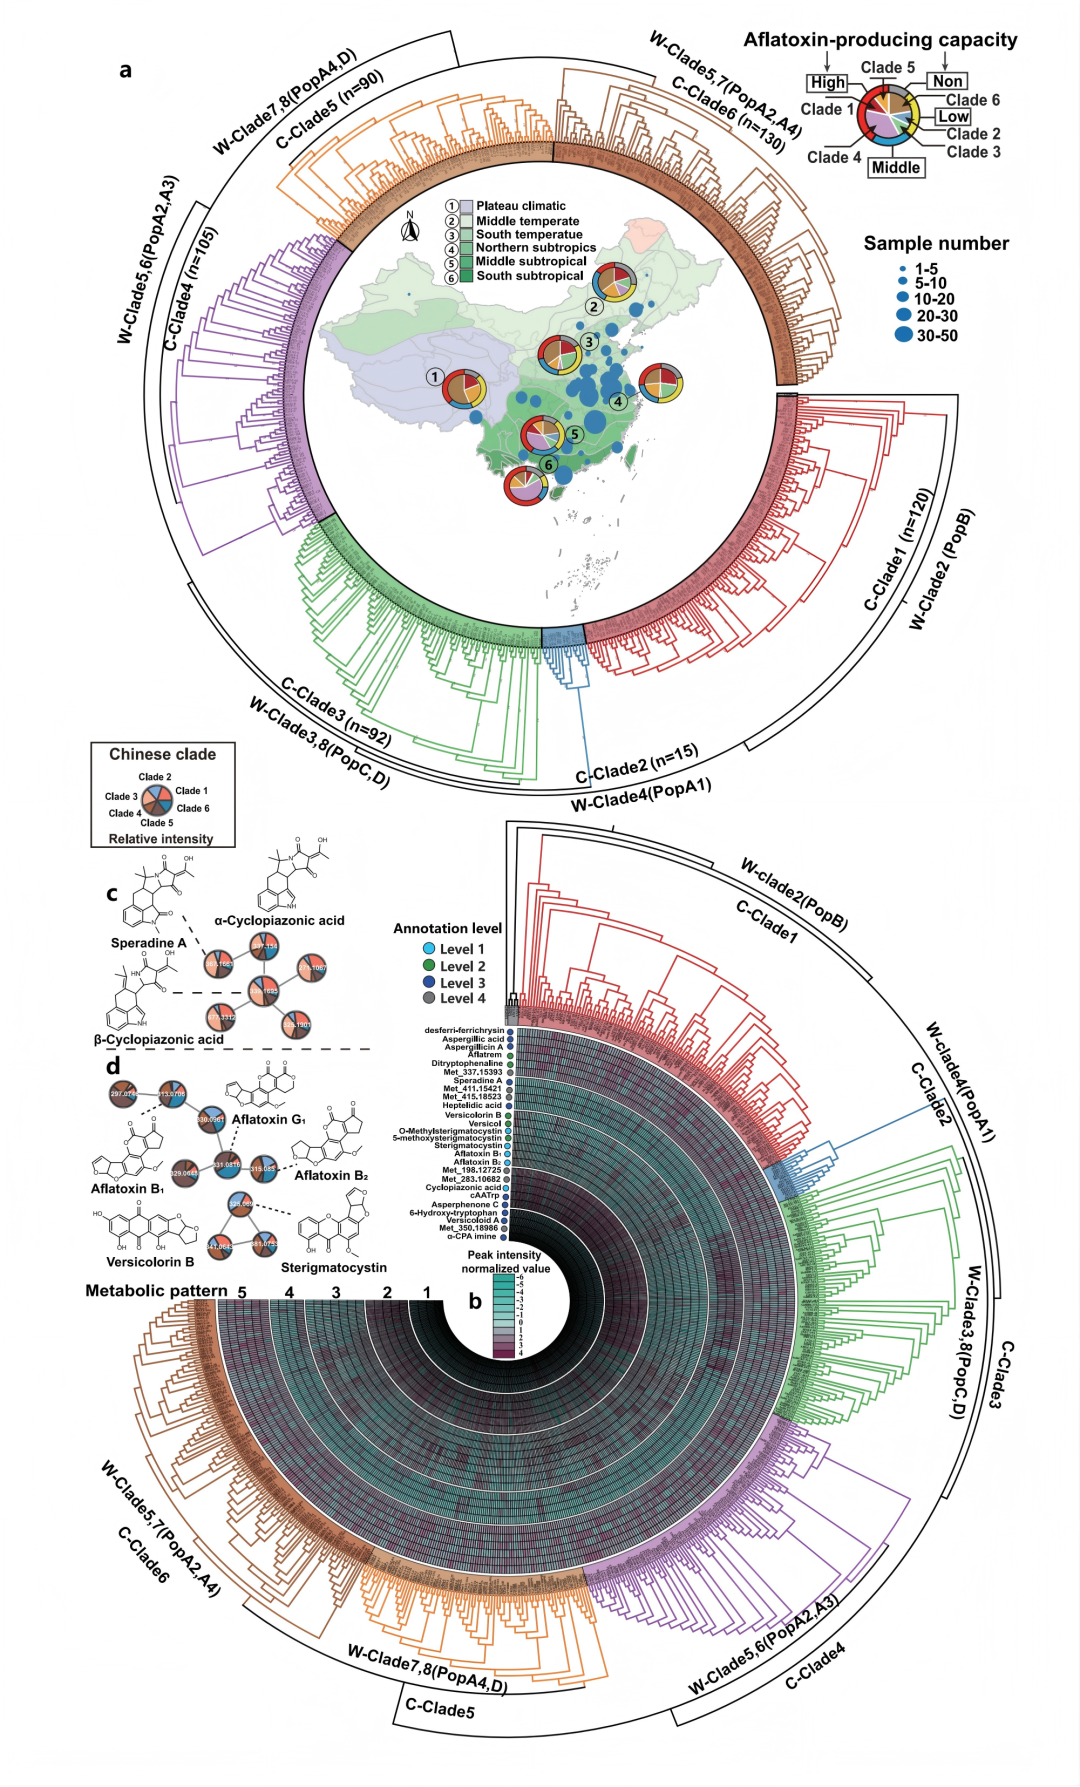
▲ 图2:中国菌株产毒“地理学”——中/南亚热带高产毒(74%/62%),低产毒株常转而生产其他毒素。
把镜头拉近到中国,规律更加清晰。研究首先绘制了中国菌株的系统发育树与采样点地图,再叠加产毒能力(aflatoxin-producing capacity,APC),结果一目了然:
- 中、南亚热带气候区的菌株产毒能力显著更高(中/高产毒株分别占 74% 与 62%); - 其中 W-clade 4 是典型的高产毒进化枝,成员主要来自这两个气候带; - 而低产毒进化枝并非"什么都不产"——它们往往转而合成其他代谢物,比如环匹阿尼酸(CPA)等。
这提示一个被长期忽视的风险:很多"不产黄曲霉毒素"的菌株,其实在产别的毒素。
五、第三层:超泛基因组——15,628 个基因的"加减法"
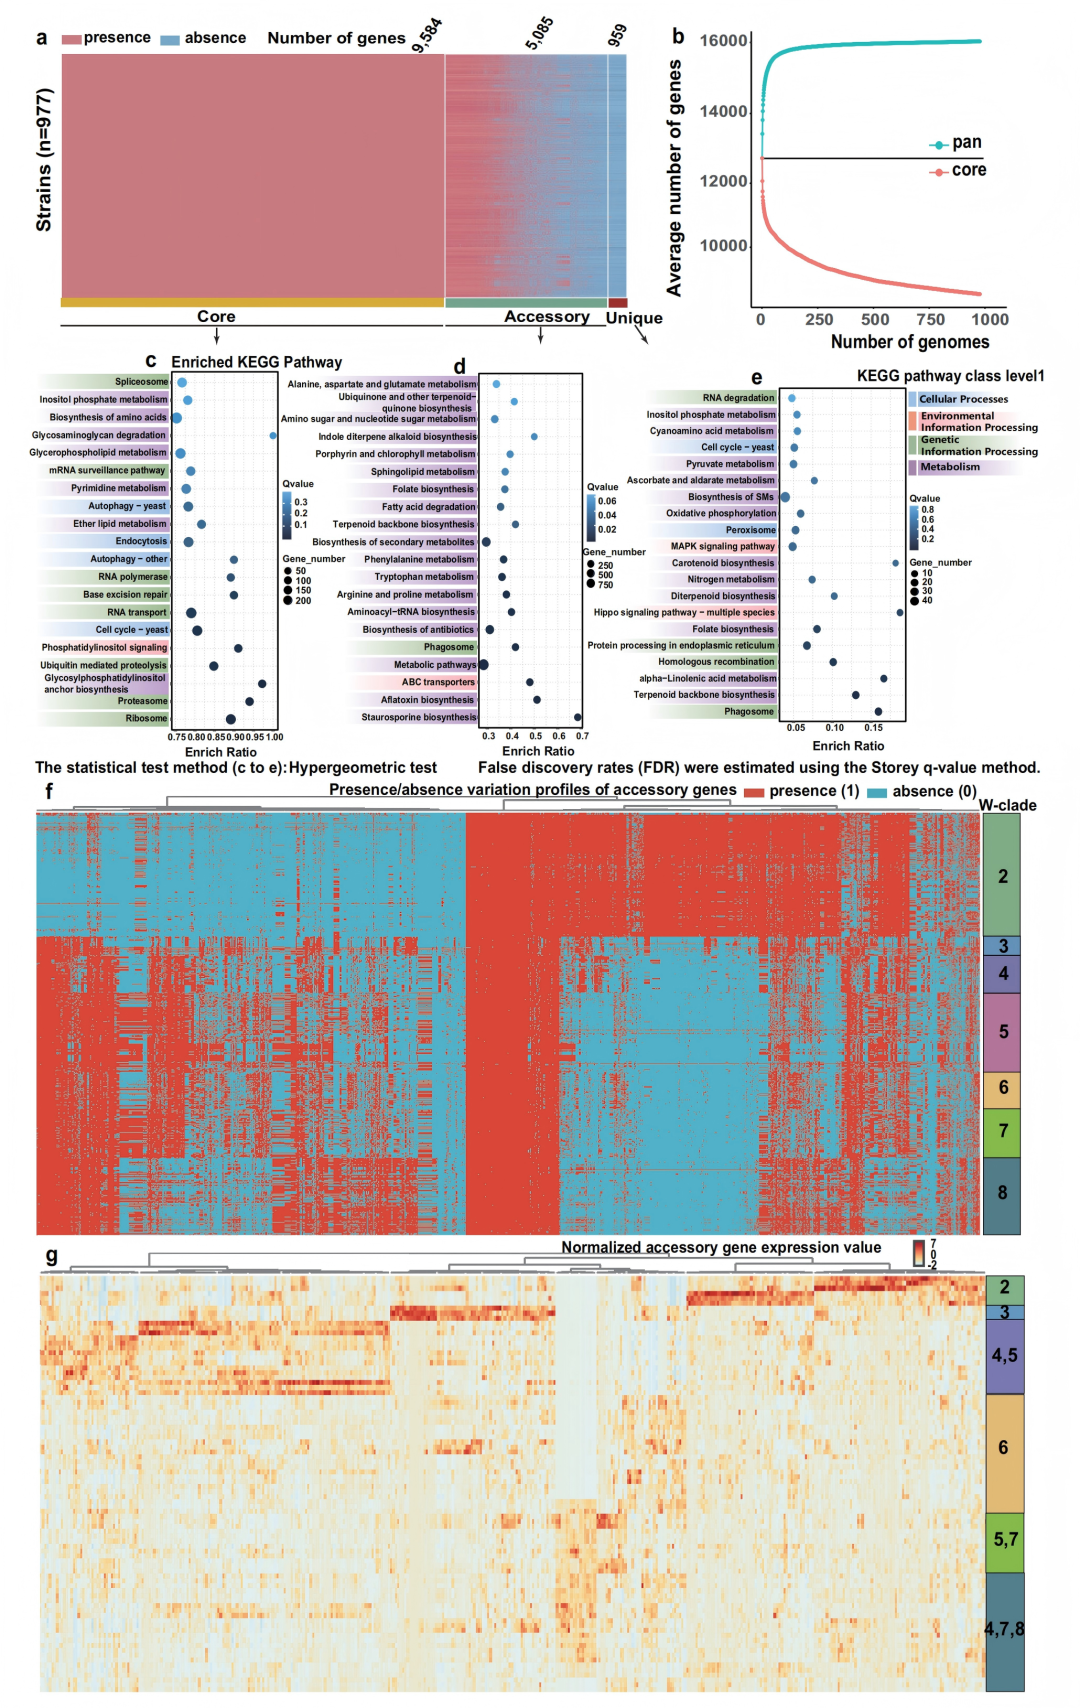
▲ 图3:超泛基因组——15,628 个直系同源基因的“加减法”,附属基因富集次生代谢等通路。
要理解毒性差异,得先看清"家底"。研究用 977 个代表性基因组构建了黄曲霉的超泛基因组,共鉴定出 15,628 个直系同源基因,并划分为三类:
- 核心基因(core):几乎所有菌株都有,管基本生存; - 附属基因(accessory):5%–95% 的菌株才有,往往与特定生态适应有关; - 特有基因(unique):不到 5% 的菌株独有。
分析显示,附属基因的"得与失"在种群间差异巨大,并且这批基因显著富集在次生代谢物合成、氨基酸代谢、碳水化合物代谢等通路上。换句话说,基因的"加减法",正是黄曲霉适应不同环境、产生不同代谢物的物质基础。
六、第四层:有产毒基因,为什么却不产毒?
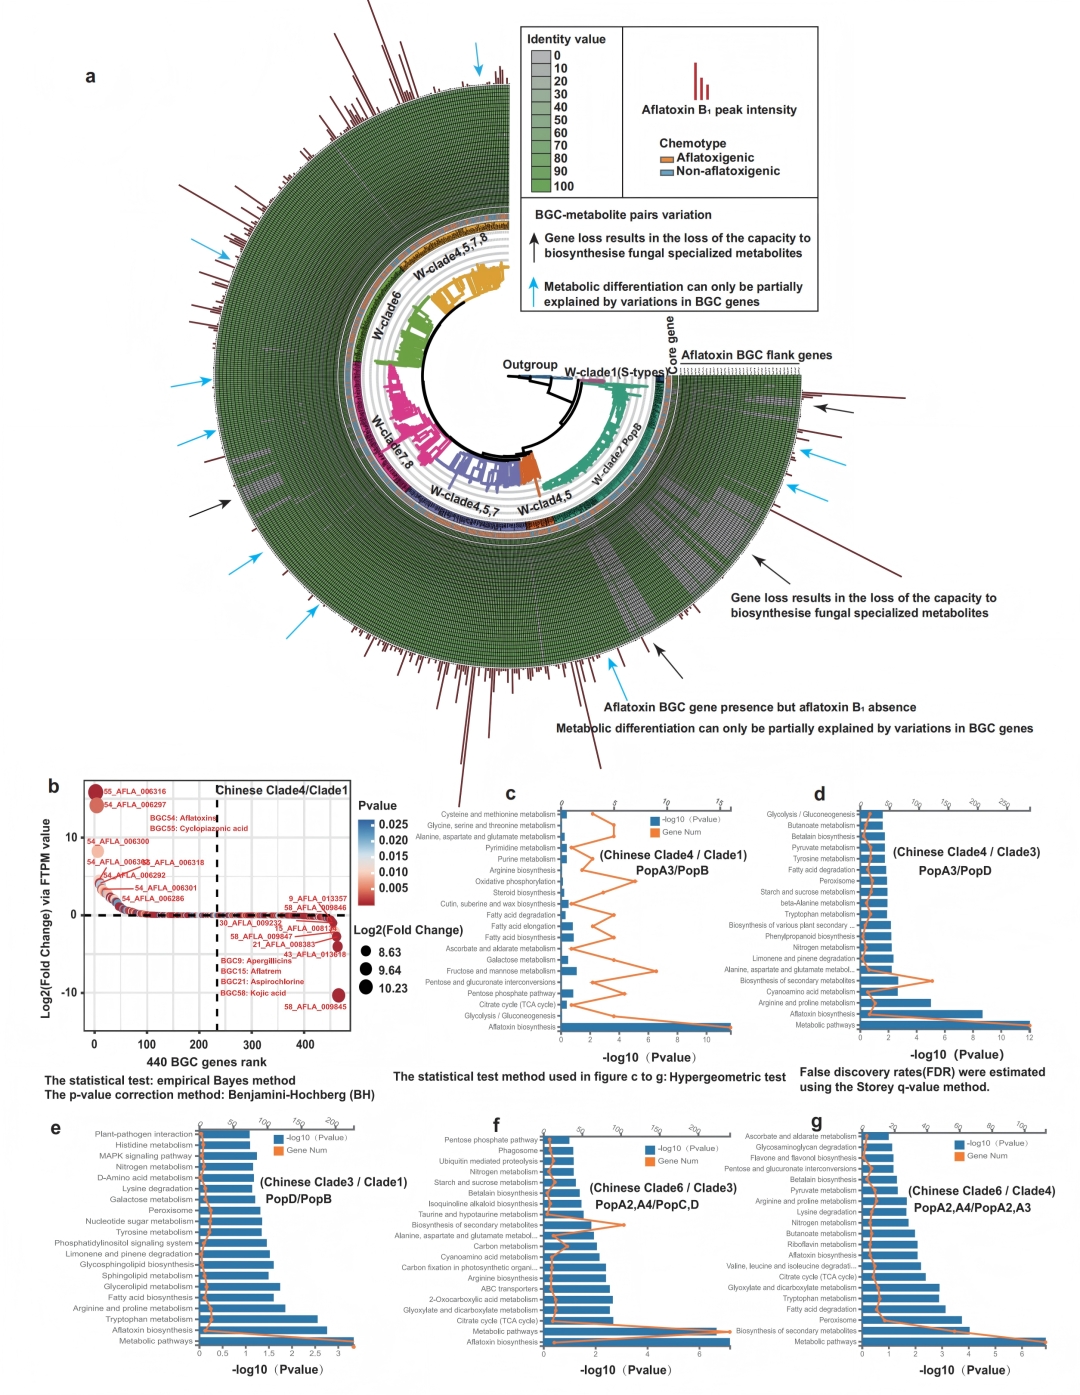
▲ 图4:有产毒基因 ≠ 产毒——44% 菌株核心 BGC 完好仍低产/不产毒,表达调控才是关键开关。
一个自然而然的猜测是:产毒与否,取决于有没有黄曲霉毒素的 BGC(生物合成基因簇)。研究对此做了严谨检验,结论却很微妙——BGC 变异只能解释一部分:
- 全基因组中共鉴定出 52,511 个 BGC(并聚类为 1707 个基因簇家族); - 在黄曲霉毒素 BGC 中,34% 的 W-clade 1 菌株、14% 的 W-clade 6 菌株发生了外周基因丢失; - 但反过来,44% 的菌株即使核心基因完好,依然不产毒或低产毒。
这说明,"有没有基因"和"产不产毒"是两回事——基因的表达调控,才是更关键的开关。
七、第五层:环境在"挑选"基因
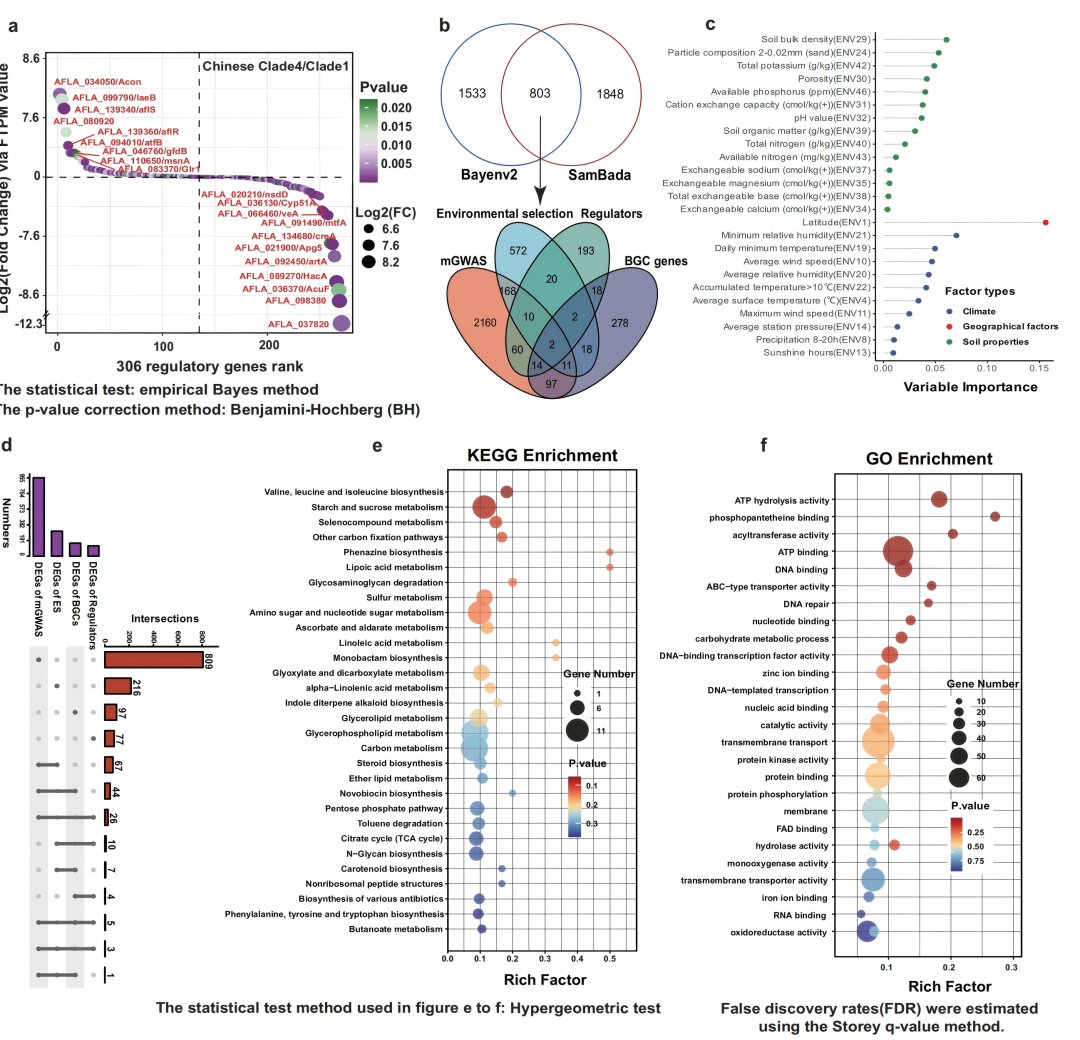
▲ 图5:环境在“挑选”基因——803 个受选择候选基因,不同进化枝 47% 调控基因差异表达。
既然环境与产毒能力高度相关,那么环境究竟在筛选哪些基因?研究用两套方法(Bayenv2 与 SamBada)做基因型–环境关联分析(GEA),锁定了 803 个受环境选择的候选基因,并把它们与 mGWAS 结果、BGC 基因取交集。
被"点名"的环境因子包括:
- 气候类:纬度、年均温、最热月最高温、降水季节性; - 土壤类:土壤容重、总钾、有效磷、pH、有机质; - 地理类:经纬度、海拔。
同时,不同进化枝之间有 47%(143/306) 的已知调控基因差异表达。环境不仅筛选基因,还在调节这些基因的"开关"。
八、第六层:从关联到因果——16 个基因的敲除实验
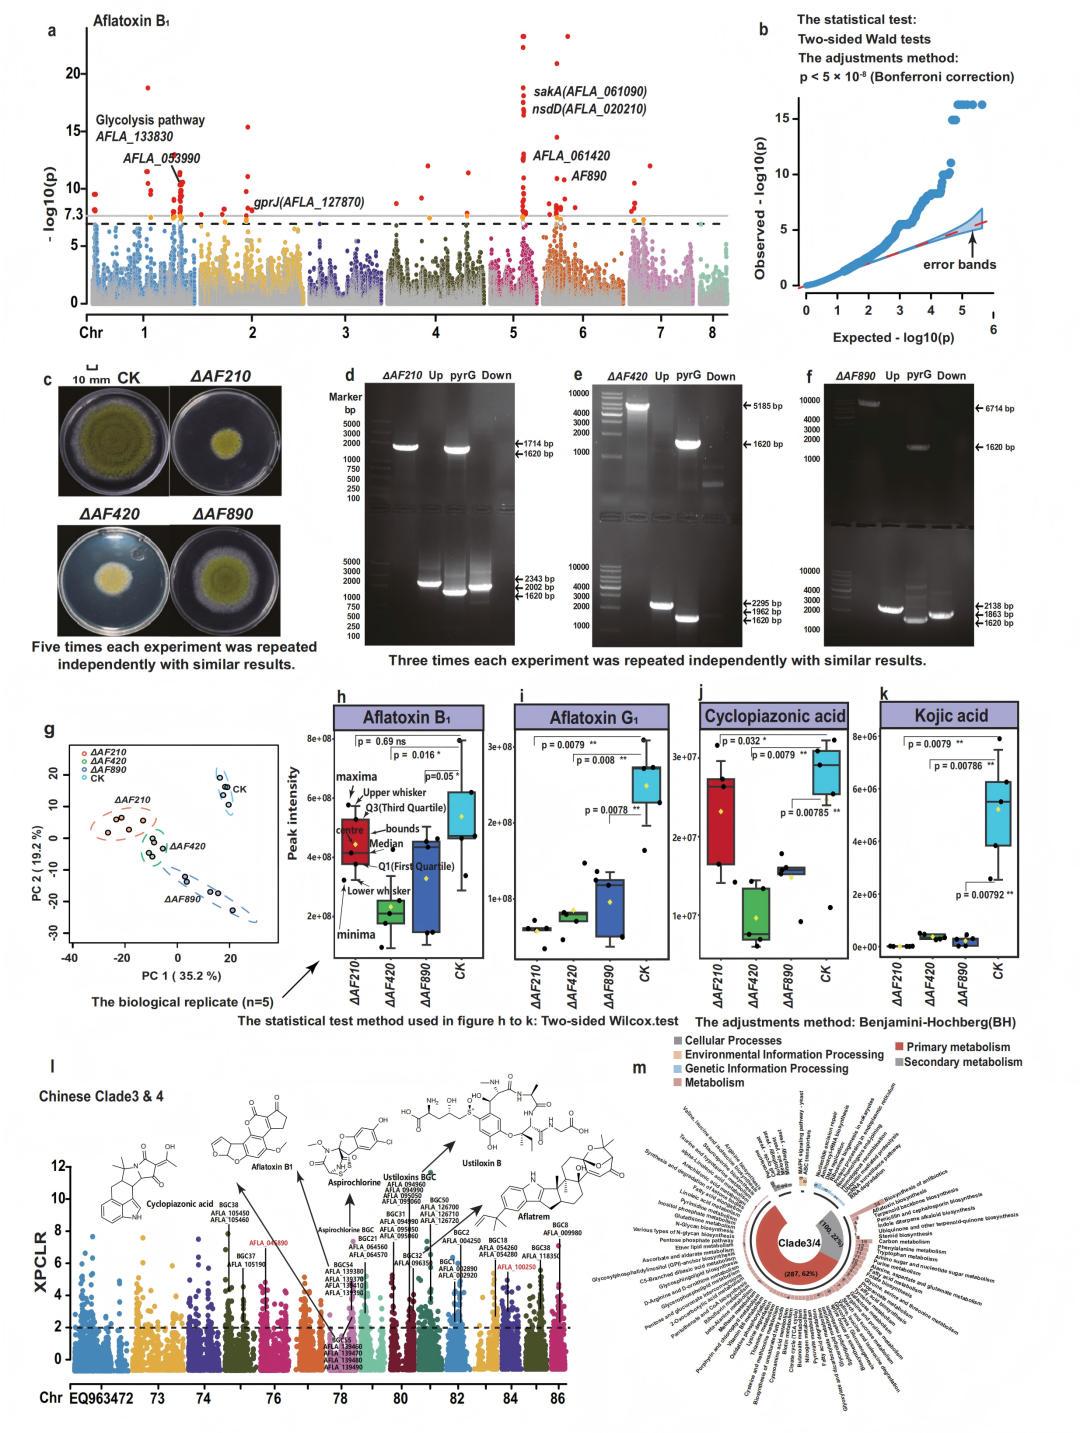
▲ 图6:从关联到因果——16 个候选调控基因敲除中 9 个显著改变代谢表型。
关联分析只能说明"相关",要坐实"因果",必须做实验。研究用 mGWAS 定位与黄曲霉毒素 B1 显著关联的位点,从中挑出 16 个候选调控基因(4 个已知:sakA、nsdD、apsA、gprJ;12 个功能未知),在菌株 LNZW-1 中逐一敲除。
结果很有说服力:
- 16 个基因中有 9 个敲除后,显著改变了真菌的代谢表型; - 敲除 nsdD、apsA 及一个未表征基因后,菌株菌丝生长直径明显变小(凝胶电泳验证敲除成功); - 黄曲霉毒素 B1、G1、环匹阿尼酸、曲酸的产量在 9/16 的突变株中显著下降; - 更妙的是,这些调控突变让高产毒枝系(Chinese clade 4)的化学表型,变得更像低产毒枝系(Chinese clade 1)。
单个基因的得失,就足以完成一次"代谢开关"的切换。
九、第七层:代谢"重排"的底层逻辑
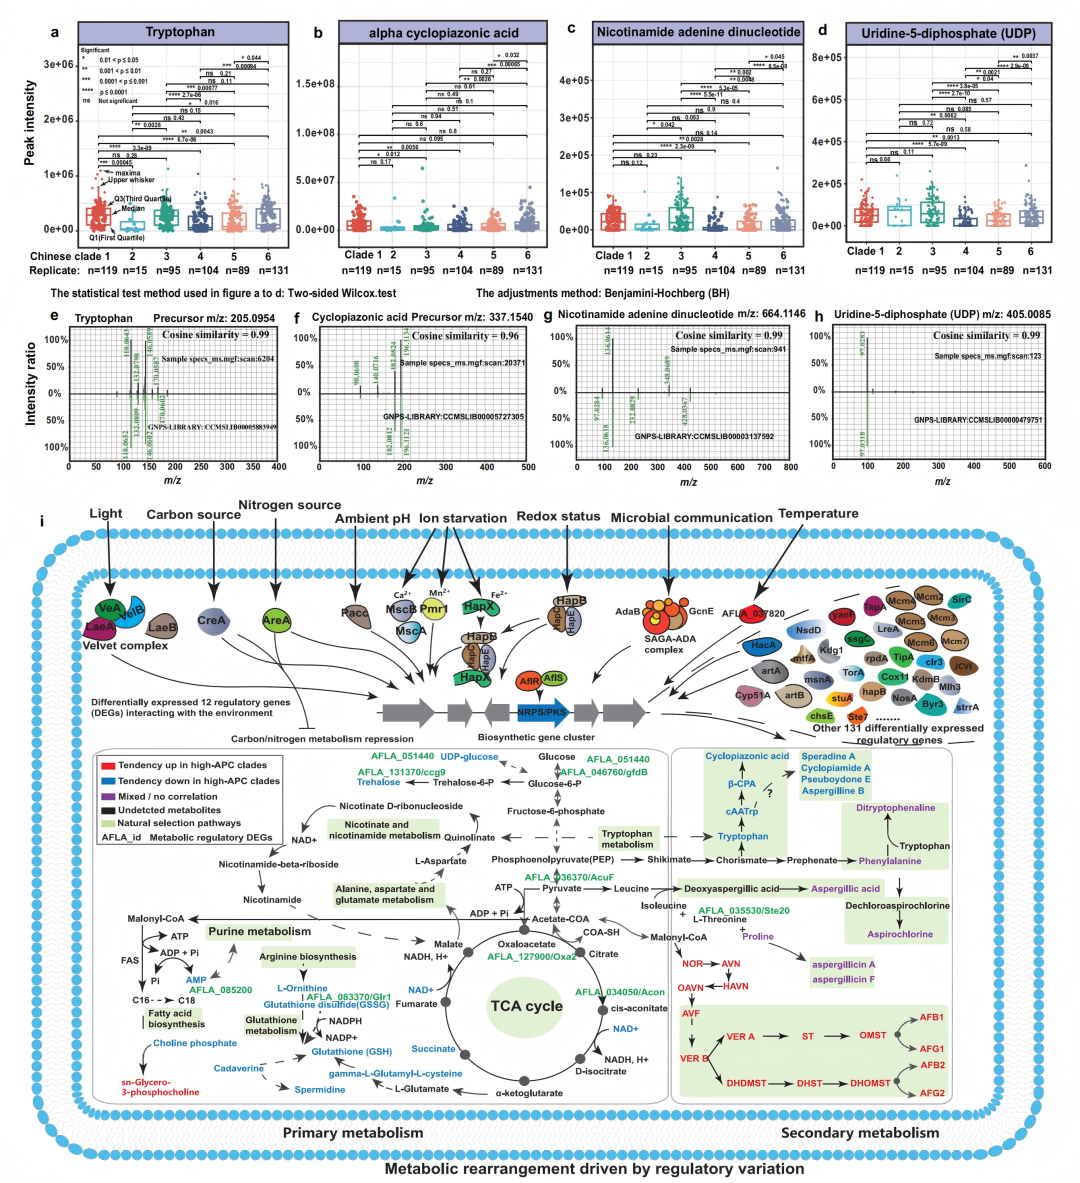
▲ 图7:代谢“重排”的底层逻辑——初级代谢前体(如色氨酸)与下游次生代谢物此消彼长。
最后一层,研究把目光投向初级代谢——也就是细胞最基础的"代谢骨架"。通过对不同进化枝代谢物丰度的对比,研究揭示出一条清晰的链条:
- 色氨酸(tryptophan)等初级代谢前体的丰度,与下游环匹阿尼酸(CPA)等次生代谢物的产量此消彼长; - NAD、UDP 等关键辅因子在不同枝系间分布迥异; - 质谱镜像图(与 GNPS 数据库比对,余弦相似度高)确认了这些代谢物的身份。
综合来看,12 个响应环境因子(光、碳源、氮源、pH、离子饥饿、氧化还原、微生物互作、温度等)的调控基因,通过重塑初级代谢,最终"重排"了次生代谢的产出。这,就是黄曲霉代谢地理格局形成的底层逻辑。
十、给研究者的启示
"大样本 × 多组学"是讲清生态–进化问题的标准配置
。单靠基因组只能看到"有什么基因",把群体代谢组叠加上去,才能回答"为什么表现不同"。基因组 + 代谢组 + 转录组的联动,正在成为微生物研究的主流打法。 "关联"之后必须补"因果"
。GEA 与 mGWAS 能高效地筛出候选位点,但真正让论文立住的,是那 16 个敲除实验——它把统计上的相关性,变成了分子层面的因果证据。对客户项目而言,多组学发现 + 敲除/过表达闭环,是把故事讲深的必经之路。 "无毒"不等于"无害"
。这项研究最有传播价值的结论之一,是提醒我们:低产毒菌株常转而生产替代毒素。在利用非产毒菌株做生物防治时,这一"被低估的风险"值得格外警惕。
结语
这项研究用 1052 株黄曲霉、四大洲的采样尺度、七套互补的分析,画出了一条从"地理与家谱"到"基因加减法",再到"环境选择与代谢重排"的完整逻辑链。
它的核心启示是:真菌的"毒性"不是天生的,而是环境长期选择与调控变异共同塑造的结果。 理解了这套机制,我们才有可能在全球气候变化的背景下,提前预判有害真菌的爆发风险,并制定"因地制宜"的精准防控策略。
▲ 原文标题:Large-scale multi-omics profiling reveals environmental and evolutionary drivers of fungal phylogeographic and metabolic diversity。